
Оставить заявку
Для заказа и получения более подробной информации оставьте заявку, наш менеджер свяжется с Вами!
Нажимая на кнопку, вы даете согласие на обработку персональных данных и соглашаетесь c политикой конфиденциальности
Гиперспектральная съёмка для картирования пространственного распределения общего азота в растении перца
Кэцян Юй¹, Яньжу Чжао¹, Сяоли Ли¹˒², Юнни Шао¹˒², Фэй Лю¹˒², Юн Хэ¹˒²*
¹ Институт инженерии биосистем и пищевых наук, Чжэцзянский университет, Ханчжоу, Китай. ² Ключевая лаборатория оборудования и информатизации сельского хозяйства с контролируемой средой, Министерство сельского хозяйства, Пекин, Китай. * yhe@zju.edu.cn.
Исследовательская статья. Открытый доступ. Редактор — Zhong-Hua Chen, Университет Западного Сиднея, Австралия. Получена 7 июня 2014 г., принята 6 декабря 2014 г., опубликована 30 декабря 2014 г.
© Yu и соавт., 2014. Лицензия Creative Commons Attribution разрешает использование, распространение и воспроизведение на любом носителе при указании авторов и источника. Все данные, лежащие в основе выводов, доступны без ограничений и приведены в статье.
Финансирование: Национальная программа высокотехнологичных исследований и разработок «863», проект 2013AA102301. Финансирующая сторона не участвовала в планировании исследования, сборе и анализе данных, принятии решения о публикации или подготовке рукописи. Авторы заявили об отсутствии конфликта интересов.
PLOS ONE, 2014, 9(12), e116205 • DOI 10.1371/journal.pone.0116205
Аннотация
Для определения пространственного распределения общего азота в растениях перца использовали гиперспектральную съёмку в видимом и ближнем инфракрасном диапазонах (Vis/NIR). Получили гиперспектральные изображения листьев, стеблей и корней и измерили содержание общего азота (TNC) методом сжигания по Дюма. Средние спектры образцов извлекли из областей интереса (ROI). Алгоритм Random Frog (RF) применили для отбора длин волн, информативных для прогнозирования TNC отдельно в листьях, стеблях, корнях и для растения в целом (лист — стебель — корень). По полным спектрам и отобранным длинам волн методом регрессии частичных наименьших квадратов (PLSR) построили количественные зависимости между спектральными данными и TNC для отдельных органов и целого растения. Модель PLSR по отобранным длинам волн для целого растения показала коэффициент корреляции прогноза Rₚ = 0,876 и среднеквадратическую ошибку прогноза RMSEP = 0,426 %. Затем оценили TNC для каждого пикселя в ROI и построили карту пространственного распределения общего азота. Результаты показывают перспективность гиперспектральной съёмки для определения пространственного распределения азота в растениях перца.
Введение
Перец (Capsicum annuum L.) — одна из широко используемых в мире кулинарных пряностей [1, 2]. Мировое производство составляет около 19 млн т свежих плодов с 1,5 млн га [3]. Азот (N) необходим для вегетативного роста, цветения и плодоношения [4–8], а также для клеточного обмена веществ и процессов, связанных с генетическим кодированием [9]. Для обеспечения роста и стабильной урожайности производители часто вносят азотные удобрения с избытком. Это может приводить к полеганию, задержке созревания, болезням и распространению сорняков [10, 11]. Оценка азотного статуса и пространственного распределения азота на разных стадиях роста в реальном времени необходима для повышения эффективности управления посевами и экономической отдачи, а также для устойчивого сельского хозяйства [12, 13].
Традиционное определение TNC химическим анализом разрушает образец, требует времени и средств [14]. TNC напрямую связано с образованием хлорофилла [15, 16], поэтому его содержание в листьях теоретически может служить индикатором азотного статуса [17, 18]. Прибор SPAD даёт косвенную точечную оценку содержания хлорофилла [19]. Одного измерения недостаточно для точного определения концентрации во всём листе. Кроме того, SPAD не даёт сведений о других частях растения, например бутонах и стеблях. Спектроскопию Vis/NIR применяют для анализа сельскохозяйственной продукции. В ряде работ [20–24] её использовали для диагностики питания, содержания азота и урожайности перца. Спектроскопия не даёт пространственного распределения показателей качества, необходимого для анализа свойств продукции [25]. Дистанционное зондирование со спутников или самолётов даёт сведения о хлорофилле у множества растений на территории. Авиационный спектрометр NASA AVIRIS использовали для оценки лигнина, азота в лесном пологе и экосистемных процессов [26]. Такой подход не подходит для получения сведений о хлорофилле в отдельных растениях [27].
Гиперспектральная съёмка сочетает спектроскопию и формирование изображений, одновременно регистрируя спектральные и пространственные данные для определения физических, химических и биологических свойств образцов [28–30]. Благодаря этому она получила широкое применение в сельском хозяйстве [31]. Примеры включают картирование азота в листьях мангров и сопоставление его распределения с локальными факторами среды [32], определение N, P и K и визуализацию их распределения в листьях рапса [33], оценку накопления азота в листьях пшеницы [34], диагностику азотного дефицита по хлорофиллу листьев огурца [19], оценку азота в листьях пшеницы [35] и концентрации азота в пологе леса умеренного пояса [36]. Большинство работ посвящено химическим компонентам отдельных органов, например листьев. Исследований пространственного распределения общего азота в целых растениях методом гиперспектральной съёмки немного.
В настоящей работе гиперспектральную съёмку применили для картирования общего азота в растении перца. Задачи: (1) получить изображения листьев, стеблей и корней и измерить TNC методом Дюма, (2) извлечь спектры и отобрать информативные длины волн методом RF, (3) построить многомерные калибровочные модели PLSR для отдельных органов и целого растения по полным и сокращённым спектрам, (4) применить оптимальную модель для попиксельной оценки TNC и построить карту его распределения во всём растении.
Материалы и методы
Подготовка образцов
Исследовали 40 растений перца (Capsicum frutescens L. conoides (Mill.) Bailey). Их выращивали в теплицах Чжэцзянского университета в Ханчжоу (120°09′ в. д., 30°14′ с. ш.), Китай, в одинаковых условиях и при одинаковой агротехнике по рекомендациям Национальной информационной службы для фермеров (NAFIS) [37].
Примерно через шесть недель после пересадки все растения сформировали цветочные бутоны и вступили в раннюю стадию цветения. Исключили несколько жёлтых нижних и мелких молодых верхних листьев. Оставшиеся 11 настоящих листьев сходного размера пронумеровали сверху вниз (рис. 1). У каждого растения случайно отбирали по два листа без черешков из верхней (1–4), средней (5–8) и нижней (9–11) зон [38]. Два листа из одной зоны считали одним образцом, поскольку сухой массы одного листа не хватало для измерения общего азота. Стебель делили на три части по узлам прикрепления черешков, соответствующим верхней, средней и нижней зонам. Корни извлекали из почвы и очищали от примесей. Всего для съёмки и измерения TNC получили 280 образцов от 40 растений: 120 образцов листьев, 120 частей стеблей и 40 корней.
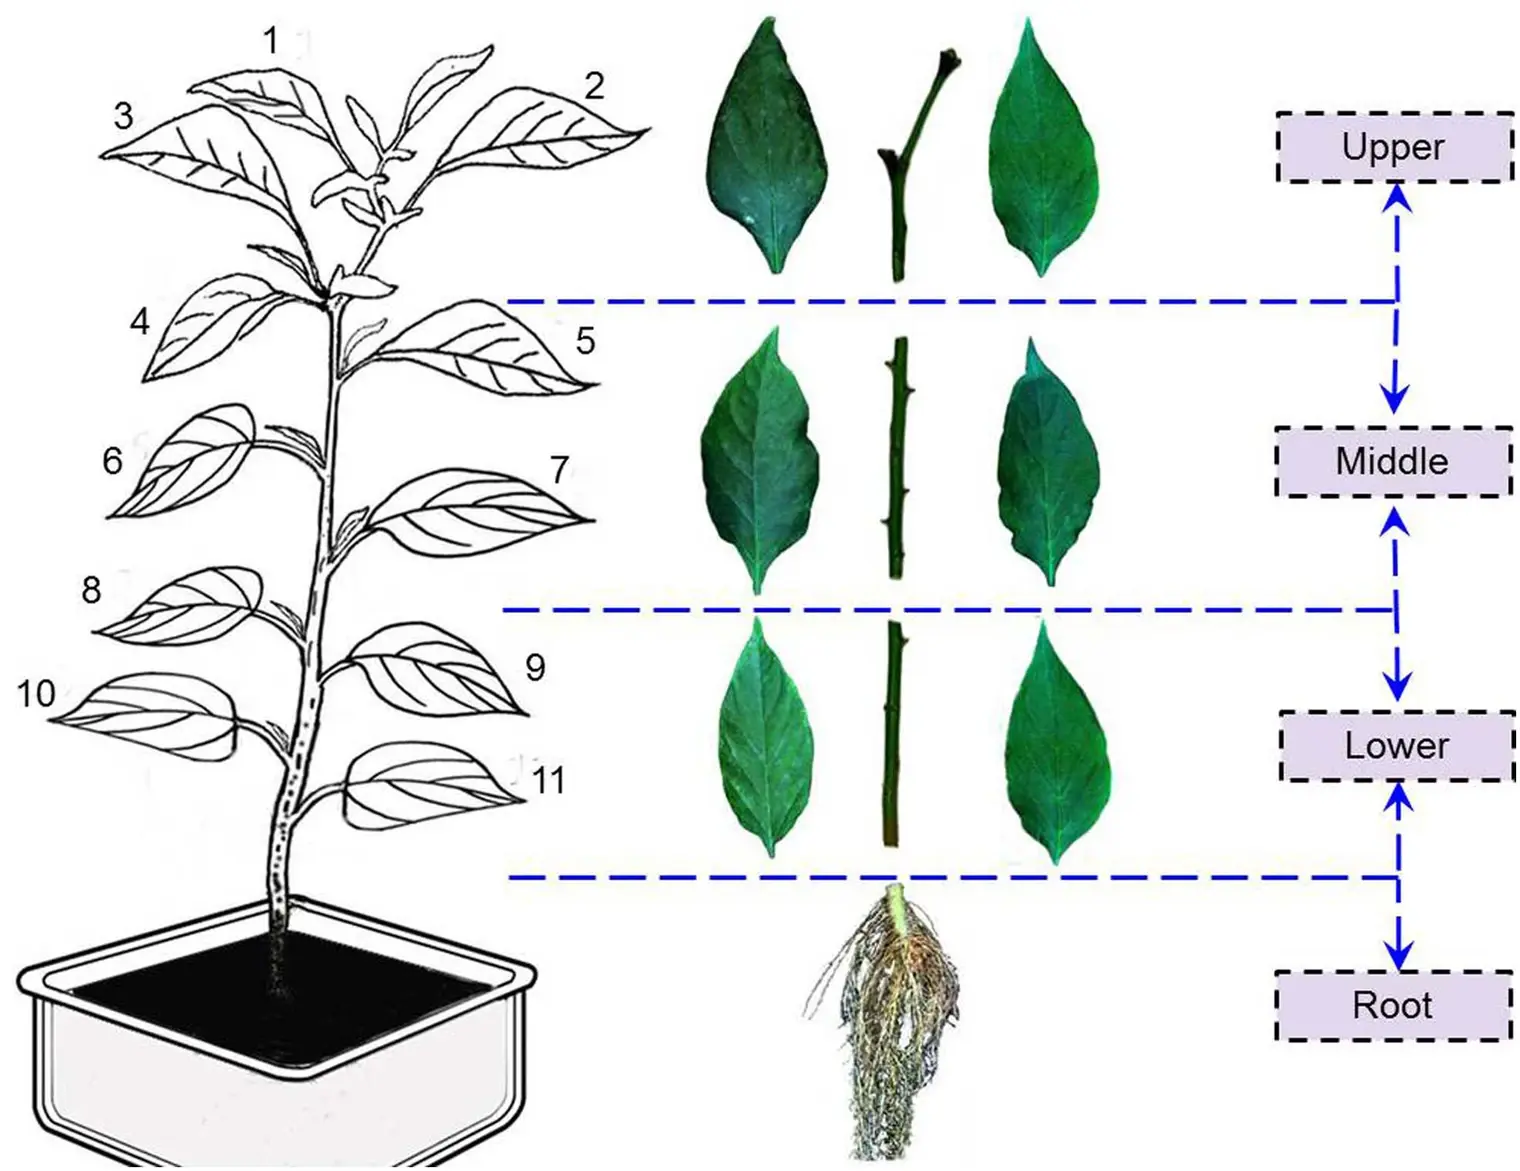
Рисунок 1. Положения образцов листьев, стебля и корня на примере одного растения перца. DOI 10.1371/journal.pone.0116205.g001.
Получение и калибровка гиперспектральных изображений
Трёхмерные данные получали в режиме отражения на лабораторной установке. В неё входили подвижная платформа с шаговым двигателем (IRCP0076, Isuzu Optics, Тайвань, Китай), осветитель с двумя кварцевыми вольфрамогалогенными лампами по 150 Вт (Fiber-Lite DC950, Dolan Jenner Industries, США), спектрограф ImSpector V10E (Spectral Imaging Ltd., Финляндия) с диапазоном 380–1030 нм и 512 каналами, ПЗС-камера C8484-05 (Хамамацу, Япония) с вариообъективом OLES23 (Specim, Оулу, Финляндия) и компьютер с ПО V10E (Isuzu Optics). ПО задавало экспозицию, скорость двигателя, получение изображений, диапазон длин волн и коррекцию. Всё оборудование, кроме компьютера, находилось в тёмной камере для минимизации влияния внешнего освещения.
Перед сканированием установку калибровали по Yu и соавт. [39]. Параметры приведены в таблице 1. Строчным сканированием формировали гиперкуб (x, y, λ): n пикселей по y в зависимости от размера образца, 672 пикселя по x и 512 спектральных каналов по λ. Исходные изображения калибровали по белому и тёмному эталонам в ПО анализа гиперспектральных изображений:
I₍калибр₎ = (I₍исх₎ − I₍тёмн₎) / (I₍бел₎ − I₍тёмн₎) (1)
I₍калибр₎ — калиброванное изображение образца, I₍исх₎ — исходное изображение, I₍бел₎ — изображение белой керамической плитки с отражением 99 %, I₍тёмн₎ — тёмный кадр с отражением 0 %, полученный при полностью закрытом непрозрачной крышкой объективе.
Таблица 1. Параметры установки гиперспектральной съёмки.
| Параметр | Значение |
|---|---|
| Спектральный диапазон | 380–1030 нм |
| Спектральное разрешение | 2,8 нм |
| Скорость перемещения платформы | 2,1 мм/с |
| Размер изображения | 672 × 512 (пространство × спектр), пикселей |
| Время экспозиции | 0,008 с |
| Расстояние от объектива до образца | 295 мм |
DOI 10.1371/journal.pone.0116205.t001.
Измерение общего азота методом Дюма
Эталонные измерения проводили методом сжигания по Дюма на анализаторе азота Rapid N cube (Elementar Analysensysteme GmbH, Ханау, Германия). После съёмки образцы высушивали до постоянной массы [40] и измельчали на Tissuelyser-48 (Jingxin Experimental Technology, Шанхай, Китай) при 70 Гц в течение 150 с. Для определения TNC использовали 50 ± 1 мг сухого вещества. После сжигания, восстановления, очистки и детектирования содержание азота в процентах получали в ПО Rapid N. Измерения проводили при температуре около 25 °C и относительной влажности 20–30 %.
Обработка и анализ гиперспектральных данных
Извлечение спектров
Функцией маскирования в ENVI выделяли область интереса каждого образца. Спектры всех пикселей ROI усредняли, получая спектр образца. Из-за низкого отношения сигнал/шум в диапазонах 380–420 и 1000–1030 нм отражение было низким. Для анализа оставили 460 каналов в диапазоне 420–1000 нм.
Отбор переменных
Отбор информативных длин волн необходим для удаления избыточной информации из многомерных данных и оптимизации калибровочных моделей [41, 42]. Выявление переменных, несущих наиболее ценную и достоверную информацию, остаётся сложной задачей [43].
Применили Random Frog — эффективный метод отбора переменных на основе схемы Монте-Карло по марковским цепям с обратимыми скачками (RJMCMC) [44, 45]. Он извлекает признаки, описывающие связь предикторов с откликом [46]. В RF для моделирования используется PLSR. Матрица спектров X (n × p) содержит n образцов по строкам и p переменных по столбцам. Y (n × 1) обозначает интересующее свойство.
Перед запуском задают пять параметров T, Q, h, v и g (табл. 2). Алгоритм работает в три этапа [47]: (1) случайно формируется начальное подмножество V₀ из Q переменных, (2) предлагается подмножество V* из Q* переменных, которое с заданной вероятностью принимается как V₁ и заменяет V₀, (3) после N итераций вычисляют вероятность отбора каждой переменной. Подробности приведены в [44, 45]. Из-за случайного характера метода Монте-Карло вероятности нельзя воспроизвести в точности. Для снижения влияния случайности RF запускают несколько раз, в зависимости от данных.
Таблица 2. Параметры запуска алгоритма Random Frog.
| Параметр | Назначение | Значение |
|---|---|---|
| T | Число итераций | 10 000 |
| Q | Число переменных в начальном наборе | 50 |
| h | Управляет дисперсией нормального распределения | 0,3 |
| v | Коэффициент, определяемый на шаге 2 | 3 |
| g | Верхняя граница вероятности | 0,1 |
DOI 10.1371/journal.pone.0116205.t002.
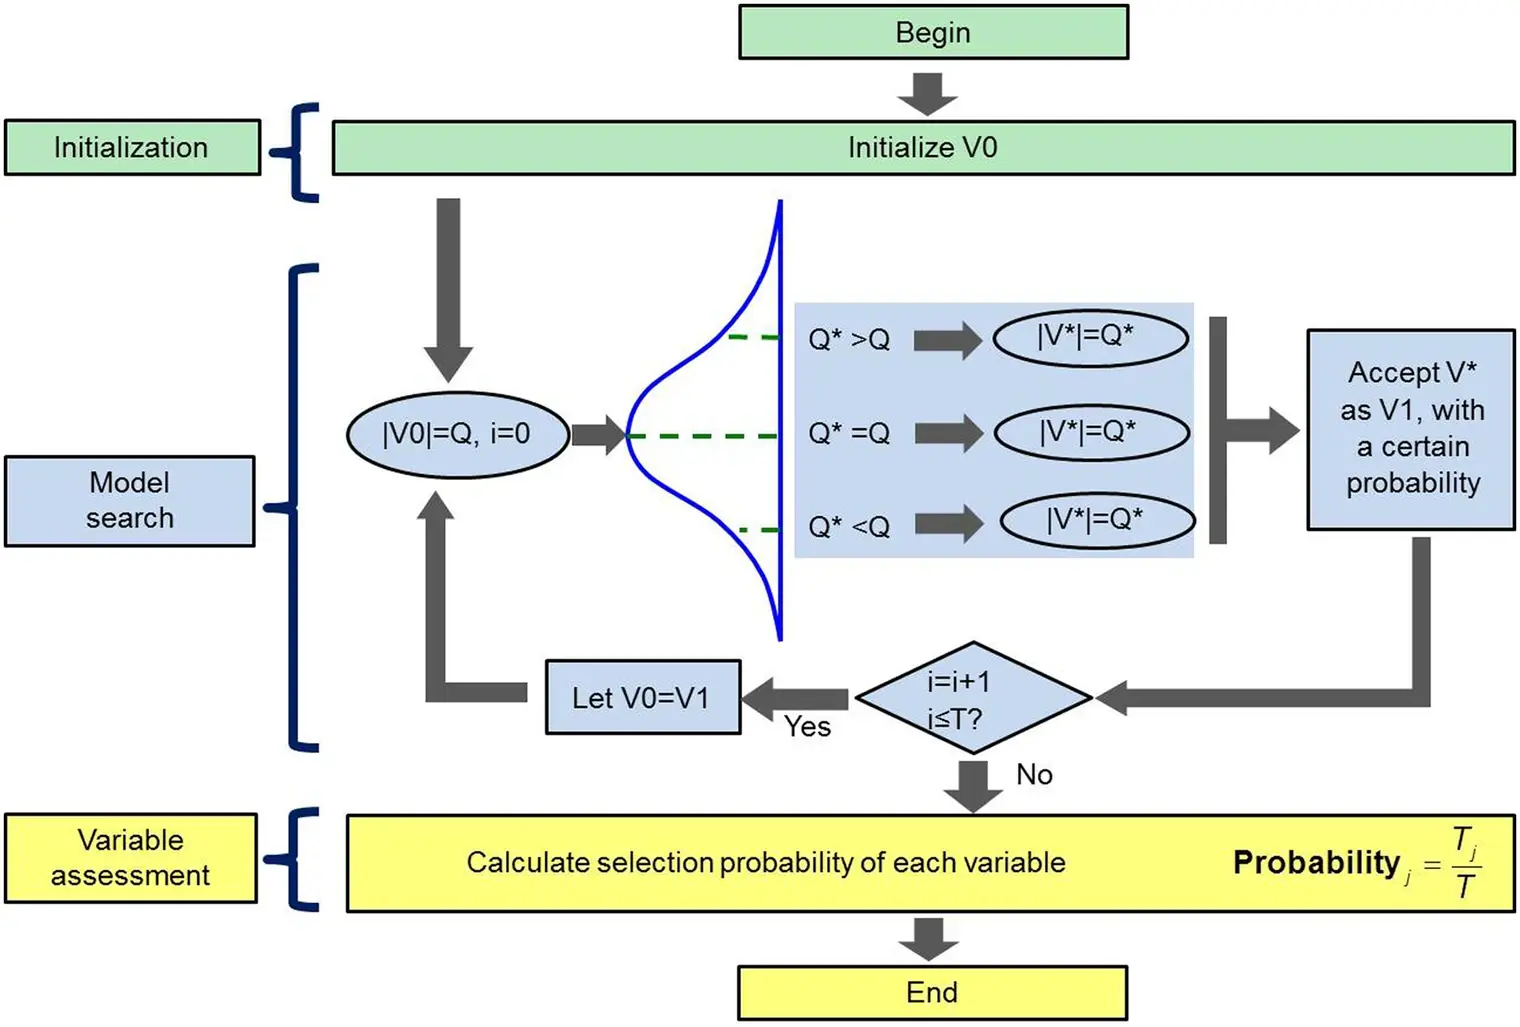
Рисунок 2. Блок-схема алгоритма Random Frog по Li и соавт. [45]. DOI 10.1371/journal.pone.0116205.g002.
Многомерный анализ данных
PLSR — надёжный инструмент построения моделей [48–51], широко применяемый в многомерном анализе и регрессии. Он подходит для ситуаций, когда переменных больше, чем образцов, или между переменными есть коллинеарность [52]. Модель использует несколько латентных переменных (LV) вместо исходных. Калибровку проверяли методом перекрёстной проверки с исключением одного образца (LOOCV) [53, 54], который позволяет оценить качество и переобучение. По PLSR установили количественные связи между отражением и TNC.
Оценка моделей
Модели оценивали по коэффициенту корреляции R и среднеквадратической ошибке RMSE в калибровочной выборке (R꜀, RMSEC), при перекрёстной проверке (RCV, RMSECV) и в прогнозной выборке (Rₚ, RMSEP). Оптимальная модель характеризуется высоким R, низкой RMSE и небольшим различием между калибровкой и прогнозом [40].
Картирование химического состава
Цветные карты позволяют визуализировать пространственное распределение химических компонентов в неоднородном образце [55]. Содержание компонента в пикселе прогнозируют, подавая его спектр отражения в количественную модель [19]. Пространственные карты получают сочетанием модели и обработки изображений. Для анализа изменчивости азота в целом растении оптимальную модель, построенную на усреднённых спектрах по информативным длинам волн, применяли к каждому пикселю. Карты формировали по координатам пикселей и рассчитанным значениям TNC [52].
Программное обеспечение
Статистику химических измерений и дисперсионный анализ (ANOVA) выполняли в Microsoft Office Excel 2010 и IBM SPSS Statistics 20.0 (IBM, Армонк, США). Спектры извлекали в ENVI 4.6 (ITT Visual Information Solutions, Боулдер, США), анализировали в The Unscrambler X10.1 (CAMO PROCESS AS, Осло, Норвегия). Пакет Random Frog 2.0 и разработанная программа картирования TNC работали в MATLAB 7.8 (R2009a), The MathWorks, Натик, США. Спектральные кривые строили в OriginPro 8.0 SR0 (Origin Lab, Нортгемптон, США). Все операции проводили на ПК с Intel Core i3-3220 3,30 ГГц, 4 ГБ ОЗУ и Windows 7.
Результаты и обсуждение
Статистический анализ содержания общего азота по методу Дюма (TNC-DC)
Результаты измерений по Дюма приведены в таблице 3 и согласуются с работами Zhang и соавт. [33], Nelson и соавт. [56] и Stevenson [57]. Средние значения последовательно снижались от листьев (3,295 %) к корням (1,186 %) и стеблям (0,992 %). В листьях и стеблях содержание возрастало от нижней зоны к средней и верхней: 2,703, 3,129 и 4,053 % для листьев и 0,736, 0,849 и 1,390 % для стеблей. Дисперсионный анализ выявил различия между органами и между участками листьев и стеблей в разных зонах.
Таблица 3. Статистические характеристики TNC-DC всех образцов.
| Образец | Зона | Число образцов | Среднее, % ± СО |
|---|---|---|---|
| Лист | Верхняя | 40 | 4,053 ± 0,498 a |
| Лист | Средняя | 40 | 3,129 ± 0,321 b |
| Лист | Нижняя | 40 | 2,703 ± 0,325 c |
| Стебель | Верхняя | 40 | 1,390 ± 0,366 a |
| Стебель | Средняя | 40 | 0,849 ± 0,175 b |
| Стебель | Нижняя | 40 | 0,736 ± 0,102 c |
| Лист | Все зоны | 120 | 3,295 ± 0,686 a |
| Стебель | Все зоны | 120 | 0,992 ± 0,374 c |
| Корень | Все | 40 | 1,186 ± 0,143 b |
| Все органы | Все | 280 | 2,007 ± 1,231 |
Разные буквы (a, b, c) в одном столбце указывают на значимость на уровне 5 % по критерию Тамхейна T2. СО — стандартное отклонение группы. Однофакторный ANOVA в IBM SPSS Statistics 20.0 выявил значимые различия между органами и между зонами листьев и стеблей.
DOI 10.1371/journal.pone.0116205.t003.
Методом SPXY (разделение выборки по совместным расстояниям x–y) Galvao и соавт. [58] образцы распределили на калибровочную выборку из 210 образцов (90 листьев, 90 стеблей и 30 корней) и прогнозную из 70 образцов (30 листьев, 30 стеблей и 10 корней). Статистика приведена в таблице 4. Диапазоны TNC-DC в калибровочной выборке составляли 2,264–4,871 % для листьев, 0,847–1,470 % для корней, 0,556–2,135 % для стеблей и 0,556–4,871 % для объединённых образцов. Широкий диапазон содержания азота важен для построения устойчивых калибровочных моделей.
Таблица 4. Статистика TNC-DC в калибровочной и прогнозной выборках.
| Орган | Калибр. n | Макс., % | Мин., % | Среднее ± СО, % | Прогн. n | Макс., % | Мин., % | Среднее ± СО, % |
|---|---|---|---|---|---|---|---|---|
| Лист | 90 | 4,871 | 2,264 | 3,357 ± 0,701 | 30 | 4,731 | 2,398 | 3,108 ± 0,612 |
| Корень | 30 | 1,470 | 0,847 | 1,183 ± 0,156 | 10 | 1,301 | 1,035 | 1,194 ± 0,103 |
| Стебель | 90 | 2,135 | 0,556 | 1,040 ± 0,403 | 30 | 1,636 | 0,599 | 0,849 ± 0,218 |
| Все | 210 | 4,871 | 0,556 | 2,114 ± 1,292 | 70 | 4,731 | 0,599 | 1,927 ± 1,218 |
n — число образцов, СО — стандартное отклонение. Широкий диапазон TNC-DC в калибровочной выборке способствует устойчивости модели. Статистика выборки перекрёстной проверки совпала с калибровочной. При LOOCV по одному образцу исключали, а на остальных строили модель для оценки воспроизводимости и устойчивости.
DOI 10.1371/journal.pone.0116205.t004.
Спектральные характеристики
На рисунке 3 приведены средние кривые отражения в диапазоне 420–1000 нм. На рис. 3(a) кривые листьев и стеблей верхней, средней и нижней зон имели сходную форму и различались уровнем отражения. От нижних зон к верхним отражение возрастало. Особенность около 550 нм обусловлена хлорофиллом, связанным с концентрацией азота [20, 32]. Небольшой минимум около 960 нм соответствует второму обертону O–H, связанному с водой в растении [19, 39, 41, 55, 59]. Участок 680–750 нм с высоким отражением обычно называют красным краем [60].
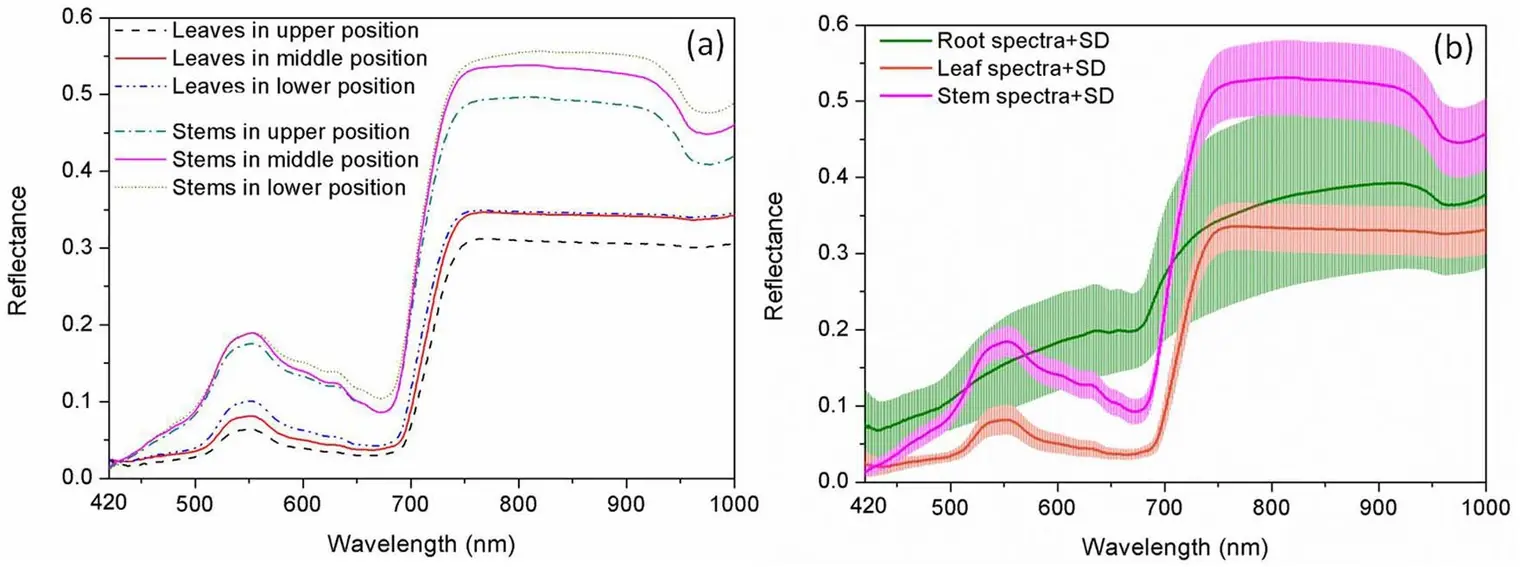
Рисунок 3. Спектральные кривые образцов перца в диапазоне 420–1000 нм. (a) Среднее отражение листьев и стеблей верхней, средней и нижней зон. (b) Среднее отражение и стандартное отклонение для листьев, стеблей и корней по всем образцам. DOI 10.1371/journal.pone.0116205.g003.
Средние значения отражения и стандартные отклонения показаны на рис. 3(b). У стеблей оба показателя были выше, чем у листьев, во всём диапазоне. Средние кривые трёх групп в нескольких местах пересекались, что объяснялось различиями строения тканей. Спектры органов формируются сложным сочетанием рассеяния и перекрывающихся полос поглощения воды и биохимических компонентов [61]. Кривая корней была сравнительно плоской и отличалась от кривых листьев и стеблей, как и в работе San Juan Martínez [21]. На поверхность корня налипали частицы почвы, из-за чего его спектр напоминал спектр почвы [21, 62].
Отбор информативных длин волн методом Random Frog
RF запускали 50 раз, а критерием значимости переменной служило среднее по 50 запускам. Вероятности отбора (SP) показаны на рис. 4. Лишь немногие длины волн имели очень высокую вероятность, у большинства она была низкой. Это указывает на слабую связь большинства каналов с содержанием азота, прогнозируемым по гиперспектральным данным (TNC-HSI). Переменные ранжировали по убыванию SP. Для исследования влияния числа длин волн на модель и выбора оптимального числа переменных [45] отобрали каналы для отдельных органов и целого растения (табл. 5).
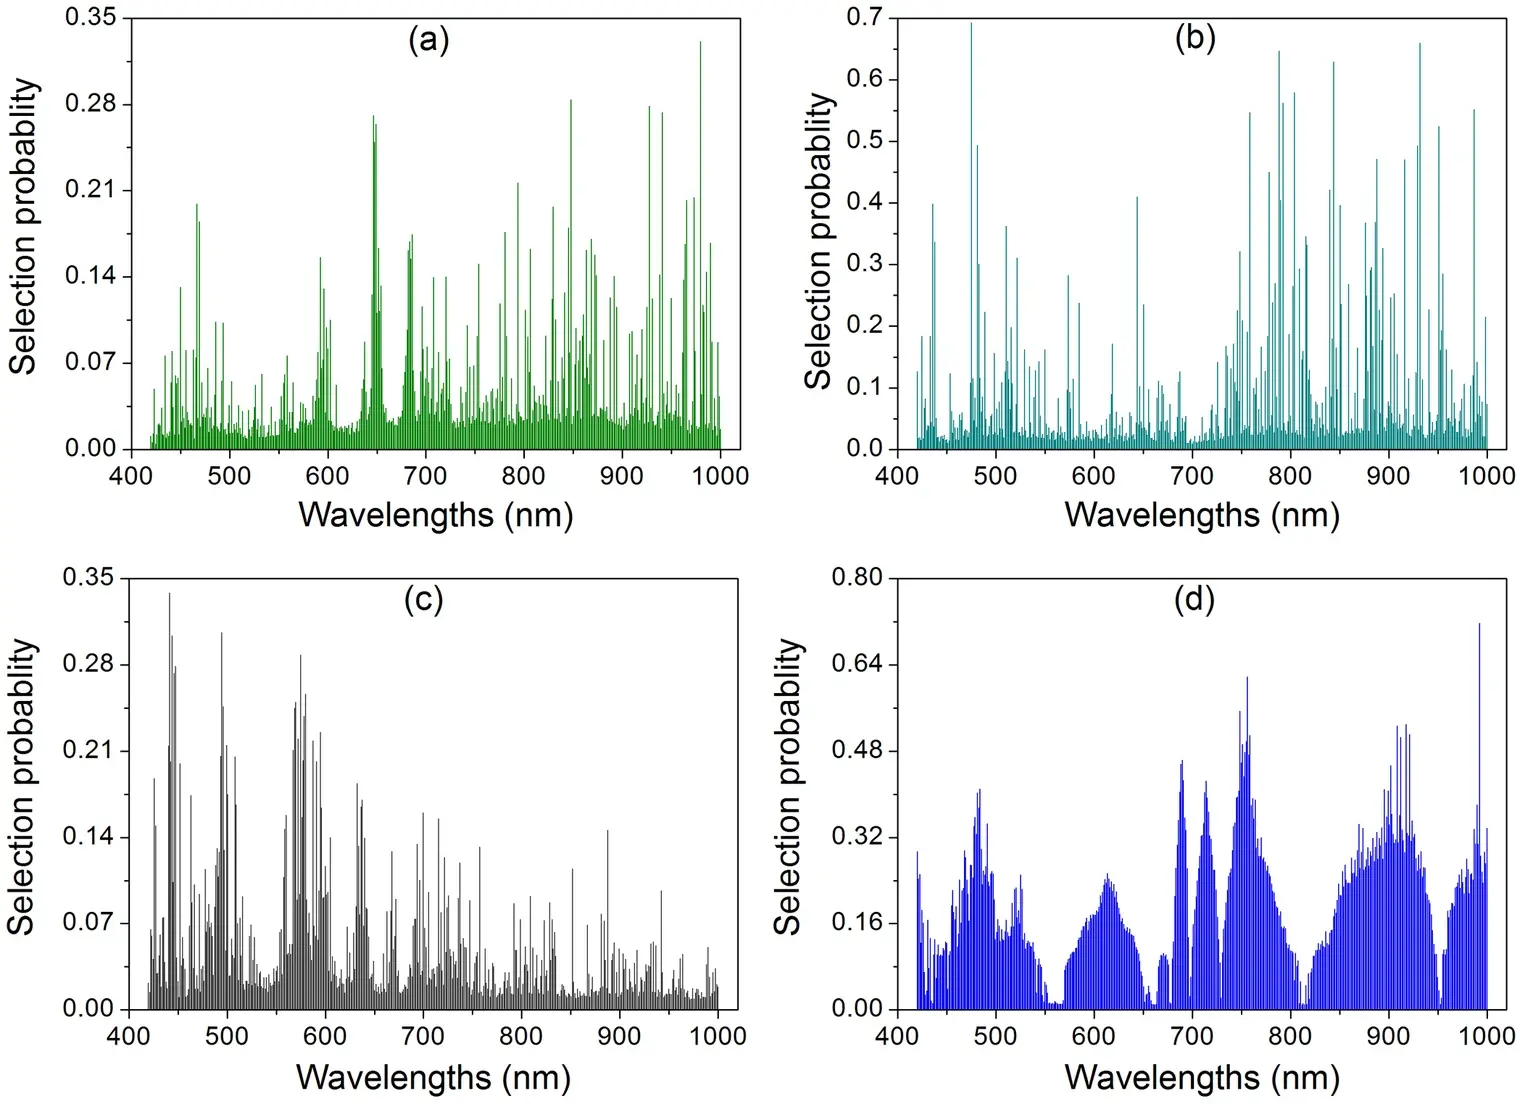
Рисунок 4. Вероятность отбора каждой длины волны, усреднённая по 50 запускам Random Frog для прогноза TNC-HSI: (a) листья, (b) стебли, (c) корни, (d) объединённые образцы листьев, стеблей и корней. DOI 10.1371/journal.pone.0116205.g004.
Таблица 5. Информативные длины волн, отобранные методом Random Frog.
| Образец | Длины волн, нм |
|---|---|
| Листья | 980, 848, 928, 941, 647, 649, 648, 794, 973, 965 |
| Стебли | 475, 932, 788, 844, 804, 792, 987, 759, 951 |
| Корни | 445, 495, 444, 575, 448, 446, 580 |
| Целое растение | 992, 756, 749, 918, 909, 921, 759, 912 |
В таблице оригинала указано 759 нм. В уравнении (2) и выводах указано 758 нм.
DOI 10.1371/journal.pone.0116205.t005.
Для листьев длины волн приходились преимущественно на области около 650, 790 и 970 нм, что согласуется с предыдущими работами [22, 23, 33, 31]. Для стеблей они группировались около 790 и 980 нм, для корней — около 445 и 580 нм, что соответствует характерным для почвы областям [21, 63]. Для целого растения длины волн 756, 749 и 759 нм отнесли к третьему обертону валентных колебаний N–H около 785 нм [31, 64, 65]. Длина волны 992 нм близка ко второму обертону валентных колебаний O–H около 970 нм [39]. Каналы 918, 909, 921 и 912 нм отнесли к третьему обертону валентных колебаний C–H свободного мономера карбоновой кислоты (934 нм) [31].
Построение моделей PLSR
Модели прогноза TNC-HSI построили отдельно для листьев, стеблей, корней и целого растения по полным спектрам и отобранным длинам волн. Результаты приведены в таблице 6. Модели отдельных органов давали более точные оценки. Как для полных, так и для сокращённых спектров различия между калибровкой и перекрёстной проверкой были небольшими. Применение трёх отдельных моделей усложняло оценку целого растения. Поскольку растение следует рассматривать как единый объект, использовали модели на объединённой выборке корней, стеблей и листьев. Они показали хорошие результаты.
Таблица 6. Результаты F-PLSR и RF-PLSR при оценке TNC-HSI.
| Образец | Модель | Каналы | LV | RC | RMSEC, % | RCV | RMSECV, % | RP | RMSEP, % |
|---|---|---|---|---|---|---|---|---|---|
| Лист | F-PLSR | 460 | 17 | 0,974 | 0,156 | 0,924 | 0,269 | 0,934 | 0,223 |
| Лист | RF-PLSR | 10 | 3 | 0,817 | 0,401 | 0,798 | 0,420 | 0,828 | 0,356 |
| Стебель | F-PLSR | 460 | 16 | 0,987 | 0,063 | 0,917 | 0,168 | 0,930 | 0,084 |
| Стебель | RF-PLSR | 9 | 5 | 0,820 | 0,229 | 0,773 | 0,254 | 0,724 | 0,157 |
| Корень | F-PLSR | 460 | 11 | 0,992 | 0,020 | 0,931 | 0,064 | 0,915 | 0,045 |
| Корень | RF-PLSR | 7 | 7 | 0,773 | 0,097 | 0,592 | 0,130 | 0,797 | 0,068 |
| Целое растение | F-PLSR | 460 | 6 | 0,904 | 0,388 | 0,893 | 0,409 | 0,908 | 0,351 |
| Целое растение | RF-PLSR | 8 | 4 | 0,878 | 0,451 | 0,874 | 0,468 | 0,876 | 0,426 |
F-PLSR — модели по полным спектрам. RF-PLSR — модели по длинам волн, отобранным RF. LV — число латентных переменных. RC и RMSEC относятся к калибровке, RCV и RMSECV — к перекрёстной проверке, RP и RMSEP — к прогнозу. В таблице указано 460 каналов, а в одном из абзацев оригинала — 406.
DOI 10.1371/journal.pone.0116205.t006.
Модель целого растения на полном спектре (F-PLSR) с шестью латентными переменными показала более устойчивые результаты, чем модель на отобранных RF длинах волн (RF-PLSR). При переходе от F-PLSR (406 переменных, как указано в этом абзаце оригинала) к RF-PLSR (8 переменных) исключили 98,26 % переменных. Коэффициенты корреляции калибровки, перекрёстной проверки и прогноза уменьшились лишь на 0,026, 0,019 и 0,032, а ошибки изменились на 0,063, 0,059 и 0,075 соответственно. Прогностическая способность RF-PLSR для целого растения немного снижалась. Вместе с тем F-PLSR с 460 каналами требует длительной обработки [51, 53] и не даёт простой линейной зависимости. Для ряда моделей отмечалось менее выраженное переобучение, что авторы связывают с выбором числа латентных переменных. Для дальнейшей работы выбрали RF-PLSR для целого растения.
С помощью RF-PLSR установили количественную связь отражения с TNC-DC. Получили следующее уравнение множественной линейной регрессии для прогноза TNC-HSI по объединённым образцам:
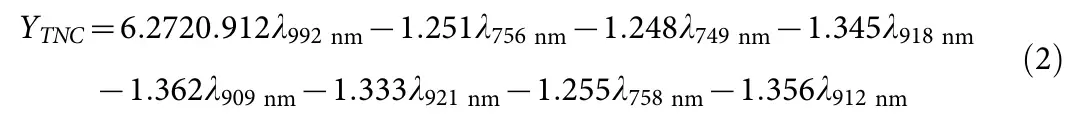
Уравнение (2) воспроизведено по оригиналу. Между 6,272 и 0,912 в печатной формуле отсутствует знак операции. Указанные здесь 758 нм отличаются от 759 нм в таблице 5.
λᵢ — коэффициент отражения на длине волны i нм, Yₜₙ꜀ — оценка содержания общего азота в целом растении перца по гиперспектральным данным.
Карты пространственного распределения общего азота
Уравнение (2) применили к каждому пикселю изображений листьев, стеблей и корня. Пиксели со сходными исходными спектрами дают сходные оценки TNC-HSI и имеют близкие цвета [55]. На рис. 5 показаны карты десяти образцов одного растения: шести листьев и трёх частей стебля из верхней, средней и нижней зон и одного корня. TNC-DC варьировало от 0,75 % для нижней части стебля до 4,76 % для верхнего листа. Сходная спектральная информация соответствует близким значениям прогноза и цветам [51, 55]. Средняя и нижняя части стебля и корень с низким TNC-DC могли иметь похожий цвет, затрудняя различение пикселей с высоким и низким содержанием. Поэтому для листьев, стеблей и корня использовали отдельные цветовые шкалы. По сравнению с исходными изображениями различия окраски внутри образца легко различались визуально.
На рис. 5 три линейные цветовые шкалы от красного к синему обозначают убывание TNC-HSI. Карты десяти образцов показывают пространственный градиент. В листьях и стеблях азот убывал от верхней зоны к нижней, что согласуется с таблицей 3 и результатами химического анализа этих образцов.
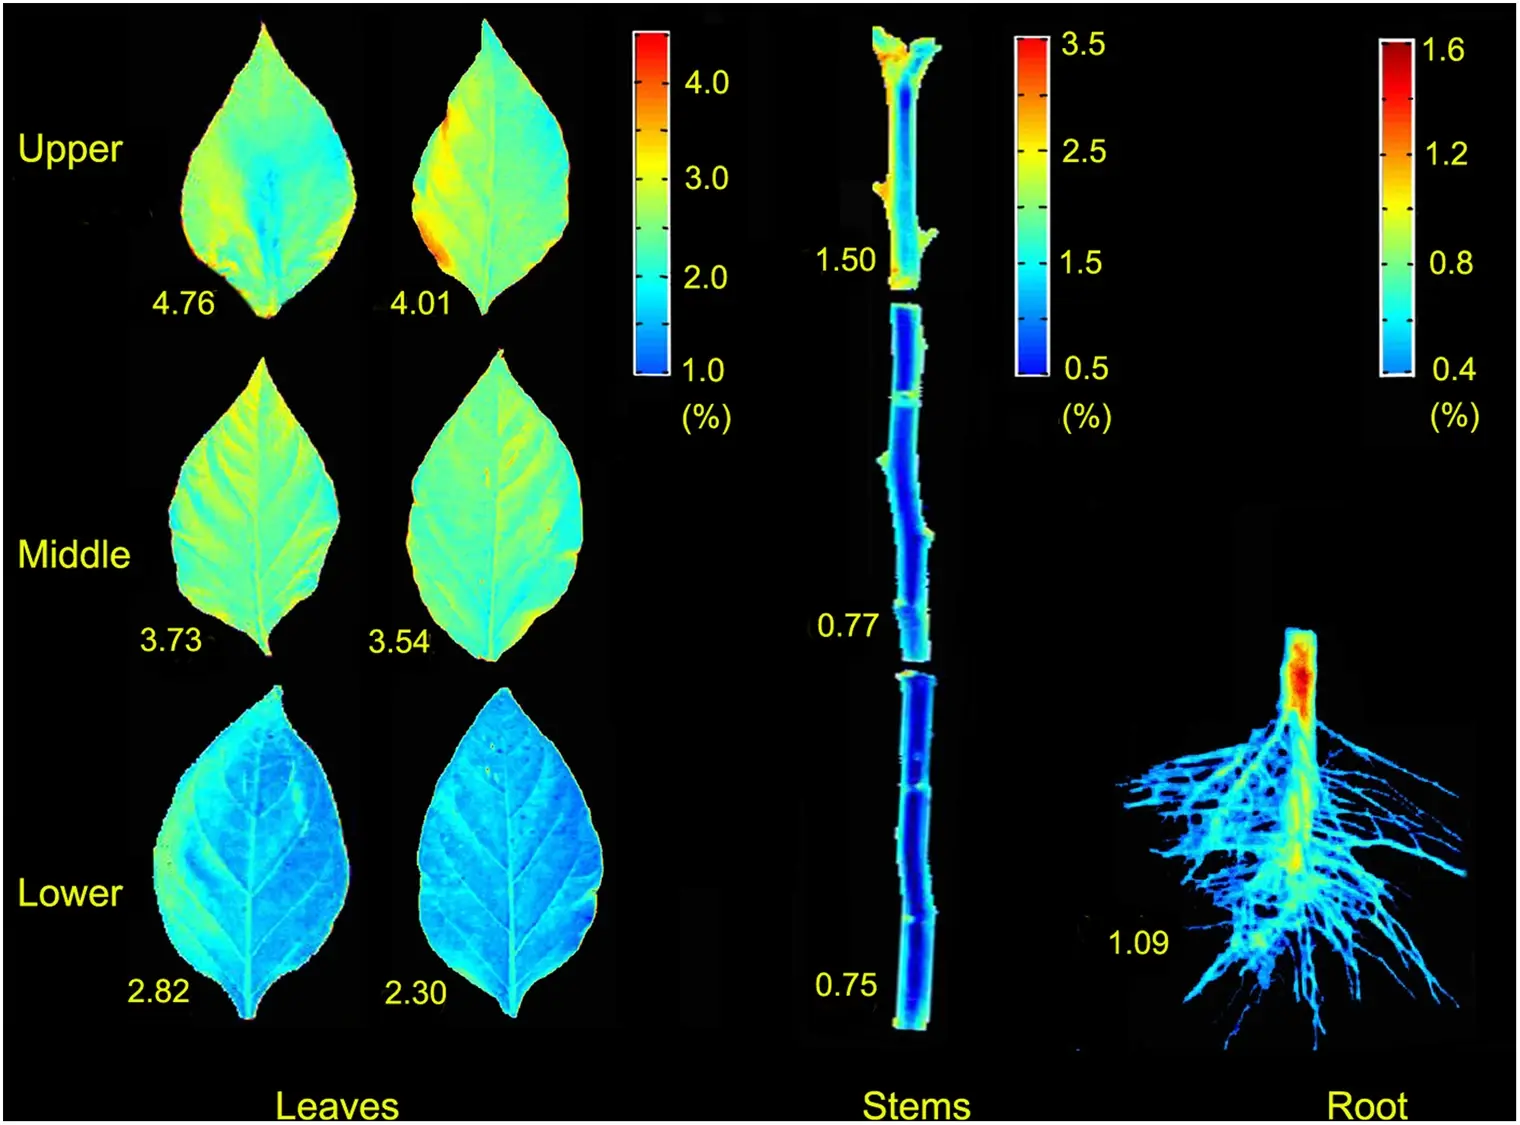
Рисунок 5. Карты распределения TNC-HSI в шести листьях, трёх частях стебля и одном корне исследованного растения. Значения рассчитаны по уравнению (2), карты построены в MATLAB. Числа рядом с картами — соответствующие значения TNC-DC. DOI 10.1371/journal.pone.0116205.g005.
Азот подвижен и в живом растении входит в состав органических соединений. Он может перераспределяться из старых листьев в молодые [19]. Азот и другие элементы питания перемещаются из корней к центрам роста, в том числе к молодым листьям, с ксилемным соком под действием транспирационной тяги [66, 67], что повышает содержание азота в молодых листьях. Распределение зависит также от сезона, возраста растения и плотности потока фотонов для листьев в разных положениях [68].
Согласно данным физиологии растений [69–72], азот поглощается поверхностью корня в форме аммония (NH₄⁺) или нитрата (NO₃⁻), поступающих с потоком воды в почве [73]. Ионы по апопласту попадают в проводящие элементы ксилемы корня. Восходящий ксилемный сок азотфиксирующих бобовых переносит соединения азота, происходящие из неорганического азота почвы, главным образом нитрата, поглощённого корнями. На ранней стадии роста листа поступление азота и других веществ, переносимых ксилемой, во многом зависит от флоэмы. В конечном счёте питательные вещества поступают из корней к различным органам и тканям с ксилемным соком.
Карты верхних и средних листьев показали сравнительно однородную окраску мезофилла. У нижних листьев светло-синие пиксели средней жилки указывали на относительно высокое TNC-HSI. На стеблях оранжевая окраска узлов прикрепления черешков соответствовала сравнительно низкому содержанию. Синие участки корневых волосков указывали на очень низкое содержание, как и синие участки стеблей и листьев.
Окраска контуров стеблей отличалась от остальных областей, возможно из-за объёмной формы. Плоские и объёмные образцы могут иметь разные спектральные характеристики [74]. Этот вопрос предполагается рассмотреть в дальнейшем.
Выводы
Методом Random Frog отобрали восемь длин волн (992, 756, 749, 918, 909, 921, 758 и 912 нм) для прогноза общего азота по объединённым образцам листьев, стеблей и корней. Методом PLSR построили зависимости между спектральным отражением и TNC-DC по полным спектрам и отобранным каналам. Модель RF-PLSR для целого растения с Rₚ = 0,876 и RMSEP = 0,426 % определили как оптимальную для прогноза TNC-HSI. Её применили к каждому пикселю и построили пространственные карты с помощью разработанной процедуры обработки изображений. Различия содержания азота внутри растения могут служить источником информации для мониторинга распределения элементов питания.
Для получения более точных и адекватных моделей следует исследовать больше сортов перца из разных мест, растений разного возраста и сроков обследования, а также расширить диапазон химических показателей. Это может создать теоретическую основу для диагностики питания культур и управления посевами.
Вклад авторов
Планирование и разработка экспериментов — KQY, YRZ, XLL, YH. Проведение экспериментов — KQY, YRZ. Анализ данных — KQY, YRZ, XLL. Реактивы, материалы и средства анализа — KQY, YRZ, XLL, YNS, FL, YH. Подготовка рукописи — KQY, YRZ.
Список литературы
1. Johnson CD, Decoteau DR (1996) Nitrogen and potassium fertility affects jalapeño pepper plant growth, pod yield, and pungency. HortScience 31: 1119–1123.
2. Bosland PW (1992) Chiles: a diverse crop. HortTechnology 2: 6–10.
3. FAOSTAT (2001) Crop water information: pepper. FAO Water Development and Management Unit. Available: http://www.fao.org/nr/water/cropinfo_pepper. html.
4. Feng L, Fang H, Zhou WJ, He Y (2006) Nitrogen stress measurement of canola based on multi-spectral charged coupled device imaging sensor. Spectroscopy and Spectral Analysis 26: 1749–1752.
5. Van Hezewijk BH, De Clerck-Floate RA, Moyer JR (2008) Effect of nitrogen on the preference and performance of a biological control agent for an invasive plant. Biological Control 46: 332–340.
6. Kumagai E, Araki T, Ueno O (2009) Effect of nitrogen-deficiency on midday photoinhibition in flag leaves of different rice (Oryza sativa L.) cultivars. Photosynthetica 47: 241–246.
7. Evans RD (2001) Physiological mechanisms influencing plant nitrogen isotope composition. Trends in Plant Science 6: 121–126.
8. Bondada BR, Oosterhuis DM (2001) Canopy photosynthesis, specific leaf weight, and yield components of cotton under varying nitrogen supply. Journal of Plant Nutrition 24: 469–477.
9. Mattson WJ (1980) Herbivory in relation to plant nitrogen content. Annual Review of Ecology and Systematics: 119–161.
10. Diacono M, Rubino P, Montemurro F (2012) Precision nitrogen management of wheat. A review. Agronomy for Sustainable Development 33: 219–241.
11. Skjødt P, Hansen PM, Jørgensen RN (2003) Sensor based nitrogen fertilization increasing grain protein yield in winter wheat. Risø Report.
12. Blackmer TM, Schepers JS, Varvel GE, Walter-Shea EA (1996) Nitrogen deficiency detection using shortwave radiation from irrigated corn canopies. Agronomy Journal 88(1): 1–5.
13. Cassman KG, Dobermann A, Walters DT (2002) Agroecosystems, nitrogen-use efficiency, and nitrogen management. AMBIO: A Journal of the Human Environment 31: 132–140.
14. Barbarino E, Lourenço SO (2009) Comparison of CHN analysis and hach acid digestion to quantify total nitrogen in marine organisms. Limnology and Oceanography: Methods 7: 751–760.
15. Boussadia O, Steppe K, Zgallai H, Ben El Hadj S, Braham M, et al. (2010) Effects of nitrogen deficiency on leaf photosynthesis, carbohydrate status and biomass production in two olive cultivars ‘Meski’ and ‘Koroneiki’. Scientia Horticulturae 123: 336–342.
16. Kamnev AA, Sadovnikova YN, Antonyuk LP (2008) Effects of nitrogen deficiency and wheat lectin on the composition and structure of some biopolymers of azospirillum brasilense Sp245. Microbiology 77: 240–242.
17. Li J, Yang J, Fei P, Song J, Li D, et al. (2009) Responses of rice leaf thickness, SPAD readings and chlorophyll a/b ratios to different nitrogen supply rates in paddy field. Field Crops Research 114: 426– 432.
18. Shaahan MM, El-Sayed AA, Abou El-Nour EAA (1999) Predicting nitrogen, magnesium and iron nutritional status in some perennial crops using a portable chlorophyll meter. Scientia Horticulturae 82: 339–348.
19. Shi J-Y, Zou X-B, Zhao J-W, Wang K-L, Chen Z-W, et al. (2012) Nondestructive diagnostics of nitrogen deficiency by cucumber leaf chlorophyll distribution map based on near infrared hyperspectral imaging. Scientia Horticulturae 138: 190–197.
20. de la Cruz-Durán JA, Sánchez-Garcı́a P, Galvis-Spı́nola A, Carrillo-Salazar JA (2011) Spectral indexes in sweet pepper for diagnosis of nitrogen nutrient status. Terra Latinoamericana 29(3): 259–265.
21. San Juan Martı́nez E (2014) Diagnosis de nitrógeno en chile de agua identificada por reflectancia. Instituto de ensenanza e investigacion en ciencias agricolas. Available: http://hdl.handle.net/10521/ 2285.
22. Durán C (2013) Reflectancia en hojas de pimiento y fresa para el diagnóstico nutrimental. Instituto de ensenanza e investigacion en ciencias agricolas. Available: http://hdl.handle.net/10521/1902.
23. Gasga Peña R (2011) Reflectancia en hojas de chile manzano (Capsicum pubescens R. y P.) para estimar contenido de nitrógeno. Institucion de ensenanza e investigacion en ciencias agricolas. Available: http://hdl.handle.net/10521/468.
24. Demirel K, Genc L, Bahar E, Inalpulat M, Smith S, Kizil U (2014) Yield estimate using spectral indices in eggplant and bell pepper grown under deficit irrigation. Fresenius Environmental Bulletin 23(5): 1232– 1237.
25. Yu K-Q, Zhao Y-R, Liu Z-Y, Li X-L, Liu F, et al. (2014) Application of visible and near-infrared hyperspectral imaging for detection of defective features in loquat. Food and Bioprocess Technology DOI: 10.1007/s11947-014-1357-z, in press.
26. Martin ME, Aber JD (1997) High spectral resolution remote sensing of forest canopy lignin, nitrogen, and ecosystem processes. Ecological Applications 7(2): 431–443.
27. Bronson KF, Booker JD, Bordovsky JP, Keeling JW, Wheeler TA, et al. (2006) Site-specific irrigation and nitrogen management for cotton production in the southern high plains. Agronomy Journal 98(1): 212–219.
28. Jackman P, Sun D-W, Du CJ, Allen P, Downey G (2008) Prediction of beef eating quality from colour, marbling and wavelet texture features. Meat Science 80: 1273–1281.
29. Jackman P, Sun D-W, Du C-J, Allen P (2009) Prediction of beef eating qualities from colour, marbling and wavelet surface texture features using homogenous carcass treatment. Pattern Recognition 42: 751–763.
30. Valous NA, Mendoza F, Sun D-W, Allen P (2009) Colour calibration of a laboratory computer vision system for quality evaluation of pre-sliced hams. Meat Science 81: 132–141.
31. Liu D, Sun D-W, Zeng X-A (2013) Recent advances in wavelength selection techniques for hyperspectral image processing in the food industry. Food and Bioprocess Technology 7: 307–323.
32. Fauzi A, Skidmore AK, Gils HV, Schlerf M, Heitkönig I (2013) Shrimp pond effluent dominates foliar nitrogen in disturbed mangroves as mapped using hyperspectral imagery. Marine Pollution Bulletin 76(1): 42–51.
33. Zhang X, Liu F, He Y, Gong X (2013) Detecting macronutrients content and distribution in oilseed rape leaves based on hyperspectral imaging. Biosystems Engineering 115: 56–65.
34. Yao X, Zhu Y, Tian Y, Feng W, Cao W (2010) Exploring hyperspectral bands and estimation indices for leaf nitrogen accumulation in wheat. International Journal of Applied Earth Observation and Geoinformation 12: 89–100.
35. Vigneau N, Ecarnot M, Rabatel G, Roumet P (2011) Potential of field hyperspectral imaging as a non destructive method to assess leaf nitrogen content in wheat. Field Crops Research 122: 25–31.
36. Smith ML, Martin ME, Plourde L, Ollinger SV (2003) Analysis of hyperspectral data for estimation of temperate forest canopy nitrogen concentration: comparison between an airborne (AVIRIS) and a spaceborne (Hyperion) sensor. IEEE Transactions on Geoscience and Remote Sensing 41: 1332–1337.
37. National Farmers Information Service (6 Jan 2014). Crop Management in the Greenhouse: Nursery Establishment. NAFIS. Available: http://www.nafis.go.ke/vegetables/tomatoes/crop-management-in-the- greenhouse/.
38. Zhao C, Wang J, Huang W, Zhou Q (2009) Spectral indices sensitively discriminating wheat genotypes of different canopy architectures. Precision Agriculture 11: 557–567.
39. Yu K, Zhao Y, Li X, Shao Y, Zhu F, et al. (2014) Identification of crack features in fresh jujube using Vis/ NIR hyperspectral imaging combined with image processing. Computers and Electronics in Agriculture 103: 1–10.
40. Li X, Luo L, He Y, Xu N (2013) Determination of dry matter content of tea by near and middle infrared spectroscopy coupled with wavelet-based data mining algorithms. Computers and Electronics in Agriculture 98: 46–53.
41. Zou X, Zhao J, Mel H, Mao H, Shi J, et al. (2010) Independent component analysis in information extraction from visible/near-infrared hyperspectral imaging data of cucumber leaves. Chemometrics and Intelligent Laboratory Systems 104: 265–270.
42. Wu D, He Y, Nie P, Cao F, Bao Y (2010) Hybrid variable selection in visible and near-infrared spectral analysis for non-invasive quality determination of grape juice. Analytica Chimica Acta 659: 229–237.
43. Cheng JH, Qu JH, Sun D-W, Zeng X-A (2014) Visible/near-infrared hyperspectral imaging prediction of textural firmness of grass carp (Ctenopharungodon idella) as affected by frozen storage. Food Research International 56: 190–198.
44. Yun Y-H, Li H-D, Wood LRE, Fan W, Wang J-J, et al. (2013) An efficient method of wavelength interval selection based on Random frog for multivariate spectral calibration. Spectrochimica Acta Part A: Molecular and Biomolecular Spectroscopy 111: 31–36.
45. Li H-D, Xu Q-S, Liang Y-Z (2012) Random frog: an efficient reversible jump Markov Chain Monte Carlo- like approach for variable selection with applications to gene selection and disease classification. Analytica Chimica Acta 740: 20–26.
46. Moscetti R, Haff RP, Saranwong S, Monarca D, Cecchini M, et al. (2014) Nondestructive detection of insect infested chestnuts based on NIR spectroscopy. Postharvest Biology and Technology 87: 88–94.
47. Yan J, Zhu W, Kong B, Lu B, Yun H, et al. (2014) A combinational strategy of model distribution and outlier comparison to define application domain in quantitative activity relationship. Molecular Informatics 33(8): 503–513.
48. Li F, Mistele B, Hu Y, Chen X, Schmidhalter U (2014) Reflectance estimation of canopy nitrogen content in winter wheat using optimised hyperspectral spectral indices and partial least-squares regression. European Journal of Agronomy 52: 198–209.
49. Wu D, He Y, Feng S, Sun D-W (2008) Study on infrared spectroscopy technique for fast measurement of protein content in milk powder based on LS-SVM. Journal of Food Engineering 84: 124–131.
50. Wu D, Nie P, Cuello J, He Y, Wang Z, et al. (2011) Application of visible and near infrared spectroscopy for rapid and non-invasive quantification of common adulterants in Spirulina powder. Journal of Food Engineering 102: 278–286.
51. He H-J, Wu D, Sun D-W (2013) Non-destructive and rapid analysis of moisture distribution in farmed Atlantic salmon (Salmo salar) fillets using visible and near-infrared hyperspectral imaging. Innovative Food Science & Emerging Technologies 18: 237–245.
52. He H-J, Wu D, Sun D-W (2014) Potential of hyperspectral imaging combined with chemometric analysis for assessing and visualising tenderness distribution in raw farmed salmon fillets. Journal of Food Engineering 126: 156–164.
53. Barbin DF, Sun D-W, Su C (2013) NIR hyperspectral imaging as non-destructive evaluation tool for the recognition of fresh and frozen-thawed porcine longissimus dorsi muscles. Innovative Food Science & Emerging Technologies 18: 226–236.
54. Wold S, Sjöström M, Eriksson L (2001) PLS-regression: a basic tool of chemometrics. Chemometrics and Intelligent Laboratory Systems 58: 109–130.
55. Zhu F, Zhang H, Shao Y, He Y, Ngadi M (2013) Mapping of fat and moisture distribution in atlantic salmon using near-infrared hyperspectral imaging. Food and Bioprocess Technology 7: 1208–1214.
56. Nelson DW, Sommers LE (1973) Determination of total nitrogen in plant material. Agronomy Journal 65(1): 109–112.
57. Stevenson FJ (1982) Nitrogen in agricultural soils. In:, Olson RA, Kurtz LT, , editors. Crop nitrogen requirements, utilization, and fertilization. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America. pp. 567–604.
58. Galvao RK, Araujo MC, Jose GE, Pontes MJ, Silva EC, et al. (2005) A method for calibration and validation subset partitioning. Talanta 67: 736–740.
59. Penuelas J, Filella I, Biel C, Serrano L, Save R (1993) The reflectance at the 950–970 nm region as an indicator of plant water status. International Journal Remote Sensing 14: 1887–1905.
60. Cho MA, Skidmore AK (2006) A new technique for extracting the red edge position from hyperspectral data: the linear extrapolation method. Remote Sensing of Environment 101: 181–193.
61. Kokaly RF (2001) Investigating a physical basis for spectroscopic estimates of leaf nitrogen concentration. Remote Sensing of Environment 75: 153–161.
62. Li D, Chen X, Peng Z, Chen S, Chen W, et al. (2012) Prediction of soil organic matter content in a litchi orchard of South China using spectral indices. Soil and Tillage Research 123: 78–86.
63. Rossel RAV, Behrens T (2010) Using data mining to model and interpret soil diffuse reflectance spectra. Geoderma 158: 46–54.
64. Lee YJ, Yang CM, Chang KW, Shen Y (2008) A simple spectral index using reflectance of 735 nm to assess nitrogen status of rice canopy. Agronomy Journal 100: 205–212.
65. Inoue Y, Sakaiya E, Zhu Y, Takahashi W (2012) Diagnostic mapping of canopy nitrogen content in rice based on hyperspectral measurements. Remote Sensing of Environment 126: 210–221.
66. Elmasry G, Kamruzzaman M, Sun D-W, Allen P (2012) Principles and applications of hyperspectral imaging in quality evaluation of agro-food products: a review. Critical Reviews in Food Science and Nutrition 52: 999–1023.
67. Hörtensteiner S, Feller U (2002) Nitrogen metabolism and remobilization during senescence. Journal of Experimental Botany 53: 927–937.
68. Anten NPR, Miyazawa K, Hikosaka K, Nagashima H, Hirose T (1998) Leaf nitrogen distribution in relation to leaf age and photon flux density in dominant and subordinate plants in dense stands of a dicotyledonous herb. Oecologia 113: 314–324.
69. Nobel PS (1983) Biophysical plant physiology and ecology. W.H. Freeman and Company.
70. Hopkins WG, Hüner NP (1995) Introduction to plant physiology (fourth edition). New York: J Wiley.
71. Pate JS (1973) Uptake, assimilation and transport of nitrogen compounds by plants. Soil Biology and Biochemistry 5(1): 109–119.
72. Pate JS (1980) Transport and partitioning of nitrogenous solutes. Annual Review of Plant Physiology 31: 313–340.
73. Tylova-Munzarova E, Lorenzen B, Brix H, Votrubova O (2005) The effects of NH4+ and NO32 on growth, resource allocation and nitrogen uptake kinetics of phragmites australis and glyceria maxima. Aquatic Botany 81: 326–342.
74. Geladi P, Burger J, Lestander T (2004) Hyperspectral imaging: calibration problems and solutions. Chemometrics and Intelligent Laboratory Systems 72(2): 209–217.
18 ноября 2026