
Оставить заявку
Для заказа и получения более подробной информации оставьте заявку, наш менеджер свяжется с Вами!
Нажимая на кнопку, вы даете согласие на обработку персональных данных и соглашаетесь c политикой конфиденциальности
TraitDiscover: автоматизированная платформа высокопроизводительного мультимодального фенотипирования растений с анализом признаков в реальном времени
Lingli Xuᵃ˒ᵇ˒¹, Jiafei Zhangᵃ˒ᵇ˒¹, Shijie Liᶜ˒¹, Guanlin Zhuᵈ, Hongbing Zhaoᵃ˒ᵇ, Jingjing Yangᵃ˒ᵇ, Wenjing Liᵃ˒ᵇ, Hanyu Nieᵃ˒ᵇ, Wenqi Anᵃ˒ᵇ, Bingpeng Yangᶜ˒*, Weijuan Huᵈ˒*, Zhiguo Hanᵃ˒ᵇ˒*
ᵃ Лаборатория MetaPheno, Шанхай, 201114, Китай
ᵇ PhenoTrait Technology Co., Ltd., Пекин, 100096, Китай
ᶜ Syngenta Seed Technology (China) Co., Ltd., Янлин, 712100, Китай
ᵈ Лаборатория передовых технологий селекции, Институт генетики и биологии развития Китайской академии наук, Пекин, 100101, Китай
* Авторы для переписки.
Электронная почта: lily.xu@phenotrait.com (L. Xu), joyce.zhang@phenotrait.com (J. Zhang), lishijie.li@syngentagroup.cn (S. Li), glzhu@genetics.ac.cn (G. Zhu), stefan.zhao@phenotrait.com (H. Zhao), jingjing.yang@phenotrait.com (J. Yang), wenjing.li@phenotrait.com (W. Li), hanyu.nie@phenotrait.com (H. Nie), anne.an@phenotrait.com (W. An), bingpeng.yang@syngentagroup.cn (B. Yang), wjhu@genetics.ac.cn (W. Hu), david.han@phenotrait.com (Z. Han).
¹ Эти авторы внесли равный вклад в работу.
https://doi.org/10.1016/j.atech.2025.101691
Рукопись получена 14 октября 2025 г., доработанный вариант получен 30 ноября 2025 г., статья принята 1 декабря 2025 г. Опубликована онлайн 3 декабря 2025 г.
2772-3755 / © 2025 Авторы. Опубликовано Elsevier B.V. Статья находится в открытом доступе на условиях лицензии CC BY (http://creativecommons.org/licenses/by/4.0/).
Smart Agricultural Technology 13 (2026) 101691
Содержание выпусков доступно на платформе ScienceDirect
Сайт журнала: www.journals.elsevier.com/smart-agricultural-technology
Сведения о статье
Ключевые слова: фенотипирование растений, мультимодальная съёмка, высокопроизводительная платформа, анализ признаков с применением искусственного интеллекта, выявление стресса.
Аннотация
Фенотипирование растений необходимо для выяснения взаимодействий генотипа и среды, однако традиционные методы остаются трудоёмкими и малопроизводительными. TraitDiscover преодолевает эти ограничения, объединяя мультимодальную съёмку и согласованное управление аппаратными и программными средствами в единой платформе полного цикла. В соответствии с концепцией «Триада фенотипирования растений» система объединяет трёхкоординатный модуль автоматизации с миллиметровой точностью, модульный набор датчиков для RGB-съёмки, трёхмерного лазерного сканирования или лидарной съёмки (3D), инфракрасной термографии (IR), гиперспектральной съёмки (HSI) и визуализации фотосинтеза (PS), а также специализированный программный комплекс TraitNavigator. Единый механизм пространственно-временной синхронизации позволяет надёжно анализировать временные ряды и объединять фенотипические данные из разных источников в течение всего периода роста культуры. Алгоритм DepthCropSeg и модуль ночной съёмки повышают качество извлечения признаков в сложных условиях и позволяют получать мультимодальные наборы фенотипических данных для анализа взаимодействий G×E×P. В опытах с соей, кукурузой и рисом система показала высокую чувствительность: выявляла засушливый стресс за четыре дня до появления видимых симптомов, распознавала повреждение глифосатом на 24 ч раньше ручной оценки и количественно характеризовала закономерности локальной адаптации вдоль экологических градиентов. Масштабирование системы для сложных условий открытого поля сопряжено с трудностями. Вместе с тем TraitDiscover предлагает масштабируемый подход к ускорению фенотипирования стрессовых реакций и принятию селекционных решений на основе данных и допускает дальнейшую интеграцию с технологиями искусственного интеллекта в интересах устойчивого сельского хозяйства.
1. Введение
Фенотип растений включает морфологические структуры, физиологические функции и (био)химические компоненты, проявляющиеся в определённых условиях среды [1–3]. Благодаря объединению междисциплинарных подходов, таких как анализ изображений и машинное обучение, фено́мика растений стала эффективным методом систематической количественной оценки фенотипов на разных уровнях, от клеток до популяций [4–9]. Это позволяет комплексно изучать механизмы, лежащие в основе сложных признаков растений и их реакций на воздействия окружающей среды [10].
Идеальная система фенотипирования, которую можно представить как комплексное обследование состояния растений [2], должна обеспечивать высокопроизводительные, неразрушающие, многомасштабные и динамические измерения. Это необходимо для точного изучения признаков в больших масштабах [11–14], скрининга генетических ресурсов [5,15–17], метаболомного профилирования [18] и селекции с применением искусственного интеллекта [19] в условиях биотического и абиотического стресса [20,21]. В конечном счёте это ускоряет генетический прогресс за счёт сокращения селекционных циклов и повышения точности отбора [22]. Однако основными способами получения данных долгое время оставались традиционные методы фенотипирования, такие как ручное измерение (например, площади листа и высоты растения) и разрушающий отбор проб (например, для определения биомассы и анализа состава тканей). Эти методы обычно трудоёмки, малопроизводительны и в значительной степени субъективны. Например, полевые фенотипические обследования требуют значительных трудозатрат и зависят от изменчивости среды, что ухудшает воспроизводимость данных [23,24]. Кроме того, традиционные методы обычно дают ограниченный объём фенотипической информации, вследствие чего трудно отразить сложность и динамику признаков растений [25,26]. Это ограничивает эффективность и точность селекционных программ и не отвечает требованиям современного точного земледелия [27].
Для преодоления этих ограничений разработаны платформы высокопроизводительного фенотипирования (HTPP), автоматизирующие сбор данных в больших масштабах и обеспечивающие более полный и воспроизводимый анализ признаков [16,28–32]. По условиям выращивания их принято подразделять на лабораторные, тепличные и полевые системы. Такая классификация отражает устойчивый компромисс между контролируемостью эксперимента и близостью условий к естественным [33]. Более существенны различия между двумя подходами к разработке платформ. Академические системы собственной разработки часто создаются отдельными исследователями или небольшими группами и оптимизируются для конкретных модельных видов либо ограниченного числа культур [34]. Они способны обеспечивать высокую точность в заданных условиях, но ограниченная переносимость на другие виды препятствует широкому применению в сельском хозяйстве [35]. Коммерческие платформы легче адаптируются к разным культурам, однако стандартизированная архитектура программного обеспечения и фиксированные схемы анализа часто ограничивают их гибкость и глубину при изучении сложных признаков или решении нестандартных научных задач [36]. Таким образом, для платформ HTPP сложился треугольник «точность — производительность — гибкость»: системы собственной разработки ориентированы на точность, коммерческие — на широту применения, и ни один из подходов полностью не сочетает все три свойства. Это противоречие определяет современное состояние HTPP.
В основе компромисса между точностью, производительностью и гибкостью лежит более глубокая разобщённость, обусловленная как наличием отдельных поставщиков, так и несовместимостью подходов к проектированию. Платформы перемещения, наборы датчиков и аналитические модули часто проектируют изолированно, со своими протоколами управления, драйверами получения данных и средствами постобработки [37,38]. Поэтому даже для одного высокопроизводительного эксперимента может потребоваться три и более раздельных программных комплекса: для управления движением, получения исходных изображений и извлечения фенотипических признаков. Их приходится связывать специально написанными сценариями и ручным переносом файлов. В результате сбор, передача, обработка и анализ данных слабо согласованы, особенно при совместной работе нескольких датчиков. Отсутствие единого механизма пространственно-временной синхронизации и стандартизированных интерфейсов данных затрудняет мультимодальное объединение и ограничивает использование взаимодополняющей информации из разных источников [39]. Кроме того, по-прежнему остаются нерешёнными вопросы точного измерения параметров среды и пространственно-временного согласования фенотипических данных. Это затрудняет углублённый анализ взаимодействий генотипа, среды и фенотипа (G×E×P). Для решения задачи требуется интегрированная платформа управления и анализа полного цикла, объединяющая координацию устройств, приём мультимодальных данных, синхронизацию в реальном времени и последующее извлечение признаков в единой удобной среде.
Чтобы устранить три ограничения — привязку к отдельным видам, разобщённость аппаратных и программных средств и асинхронность многосенсорных данных, — мы разработали TraitDiscover как полностью интегрированную платформу HTPP. Её основа — трёхкоординатный портал с миллиметровой точностью, управление движением, координация датчиков и последовательность аналитических операций которого объединены в единой среде выполнения. Это устраняет необходимость в отдельных инструментах управления, съёмки и постобработки. Модульный блок датчиков с возможностью горячей замены содержит пространственно согласованные модули съёмки в красном, зелёном и синем каналах (RGB), трёхмерные лазерные сканеры (3D), модули инфракрасной термографии (IR), гиперспектральной съёмки (HSI) и визуализации фотосинтеза (PS). Благодаря аппаратным временным меткам с микросекундной точностью и единой схеме данных информация всех модальностей направляется в веб-комплекс TraitNavigator. Новый алгоритм DepthCropSeg [40] сегментирует полог в сложных условиях, а специализированный модуль ночного освещения с алгоритмом PhenoNight обеспечивает стабильную съёмку и фенотипический анализ при слабом освещении [41]. Основные нововведения и вклад TraitDiscover состоят в следующем.
• Единая архитектура системы. TraitDiscover объединяет механизм перемещения (трёхкоординатный портал с миллиметровой точностью), управление датчиками и аналитическую обработку в единой среде выполнения. Система заменяет разрозненные традиционные инструменты управления и обработки.
• Высокоточная пространственно-временная синхронизация. Мы реализовали единый механизм синхронизации на основе аппаратных временных меток с микросекундной точностью и унифицированной структуры данных. Он обеспечивает точное согласование пяти модальностей съёмки — RGB, 3D, IR, HSI и PS — и надёжное объединение мультимодальных данных.
• Интеграция специализированных алгоритмов. Веб-комплекс TraitNavigator использует новый алгоритм DepthCropSeg [40] для сегментации сложного растительного полога и модуль PhenoNight [41] для надёжного фенотипического анализа при слабом освещении или ночью.
• Применимость к разным видам. Баланс точности, производительности и гибкости платформы проверен в трёх сложных сценариях: анализ временных рядов при засушливом стрессе у сои, скрининг кукурузы на устойчивость к глифосату и анализ локальной адаптации риса.
В статье подробно описаны архитектура платформы, логика управления и получения данных, а также схемы извлечения признаков. TraitDiscover проверена в трёх сложных сценариях: анализ динамики засушливого стресса у сои, скрининг устойчивости к глифосату у кукурузы и исследование локальной адаптации риса. Результаты демонстрируют надёжность и точность измерения широкого спектра агрономических признаков у разных культур при изменении условий среды, а также возможность выявлять стрессовые реакции на несколько дней раньше визуальной оценки. Это позволяет использовать TraitDiscover независимо от вида культуры для получения стандартизированных мультимодальных фенотипических данных, последующего моделирования G×E×P и ускорения разработок в области селекции и точного земледелия.
2. Материалы и методы
2.1. Общее описание платформы
Следуя концепции «Триада фенотипирования растений» [2], в которой датчики соответствуют органам зрения, автоматизация — исполнительной части, а программное обеспечение — центру управления, TraitDiscover объединяет съёмку, перемещение и анализ в единой модульной платформе, работающей по принципу «датчик к растению». Она состоит из трёх тесно связанных модулей: трёхкоординатной системы управления с миллиметровой точностью, набора специализированных датчиков и веб-приложения TraitNavigator, управляющего всеми операциями от планирования маршрута до извлечения признаков (рис. 1).
Автоматизированная система управления служит основой платформы. Высокоточные серводвигатели по осям X, Y и Z обеспечивают воспроизводимое миллиметровое позиционирование в открытом поле, теплицах и камерах с контролируемой средой. Это устраняет вариабельность, связанную с оператором, и обеспечивает стабильный сбор данных при каждом проходе. На портале установлен блок датчиков для получения данных из нескольких источников. Модульная конструкция блока позволяет интегрировать различные датчики, в том числе RGB, IR, HSI, 3D и PS.
Всеми аппаратными средствами управляет веб-интерфейс TraitNavigator. В нём планируют маршруты и настраивают задания, запускают датчики, собирают данные и анализируют их по мере поступления. Это обеспечивает надёжное высокопроизводительное фенотипирование от настройки эксперимента до получения результатов.
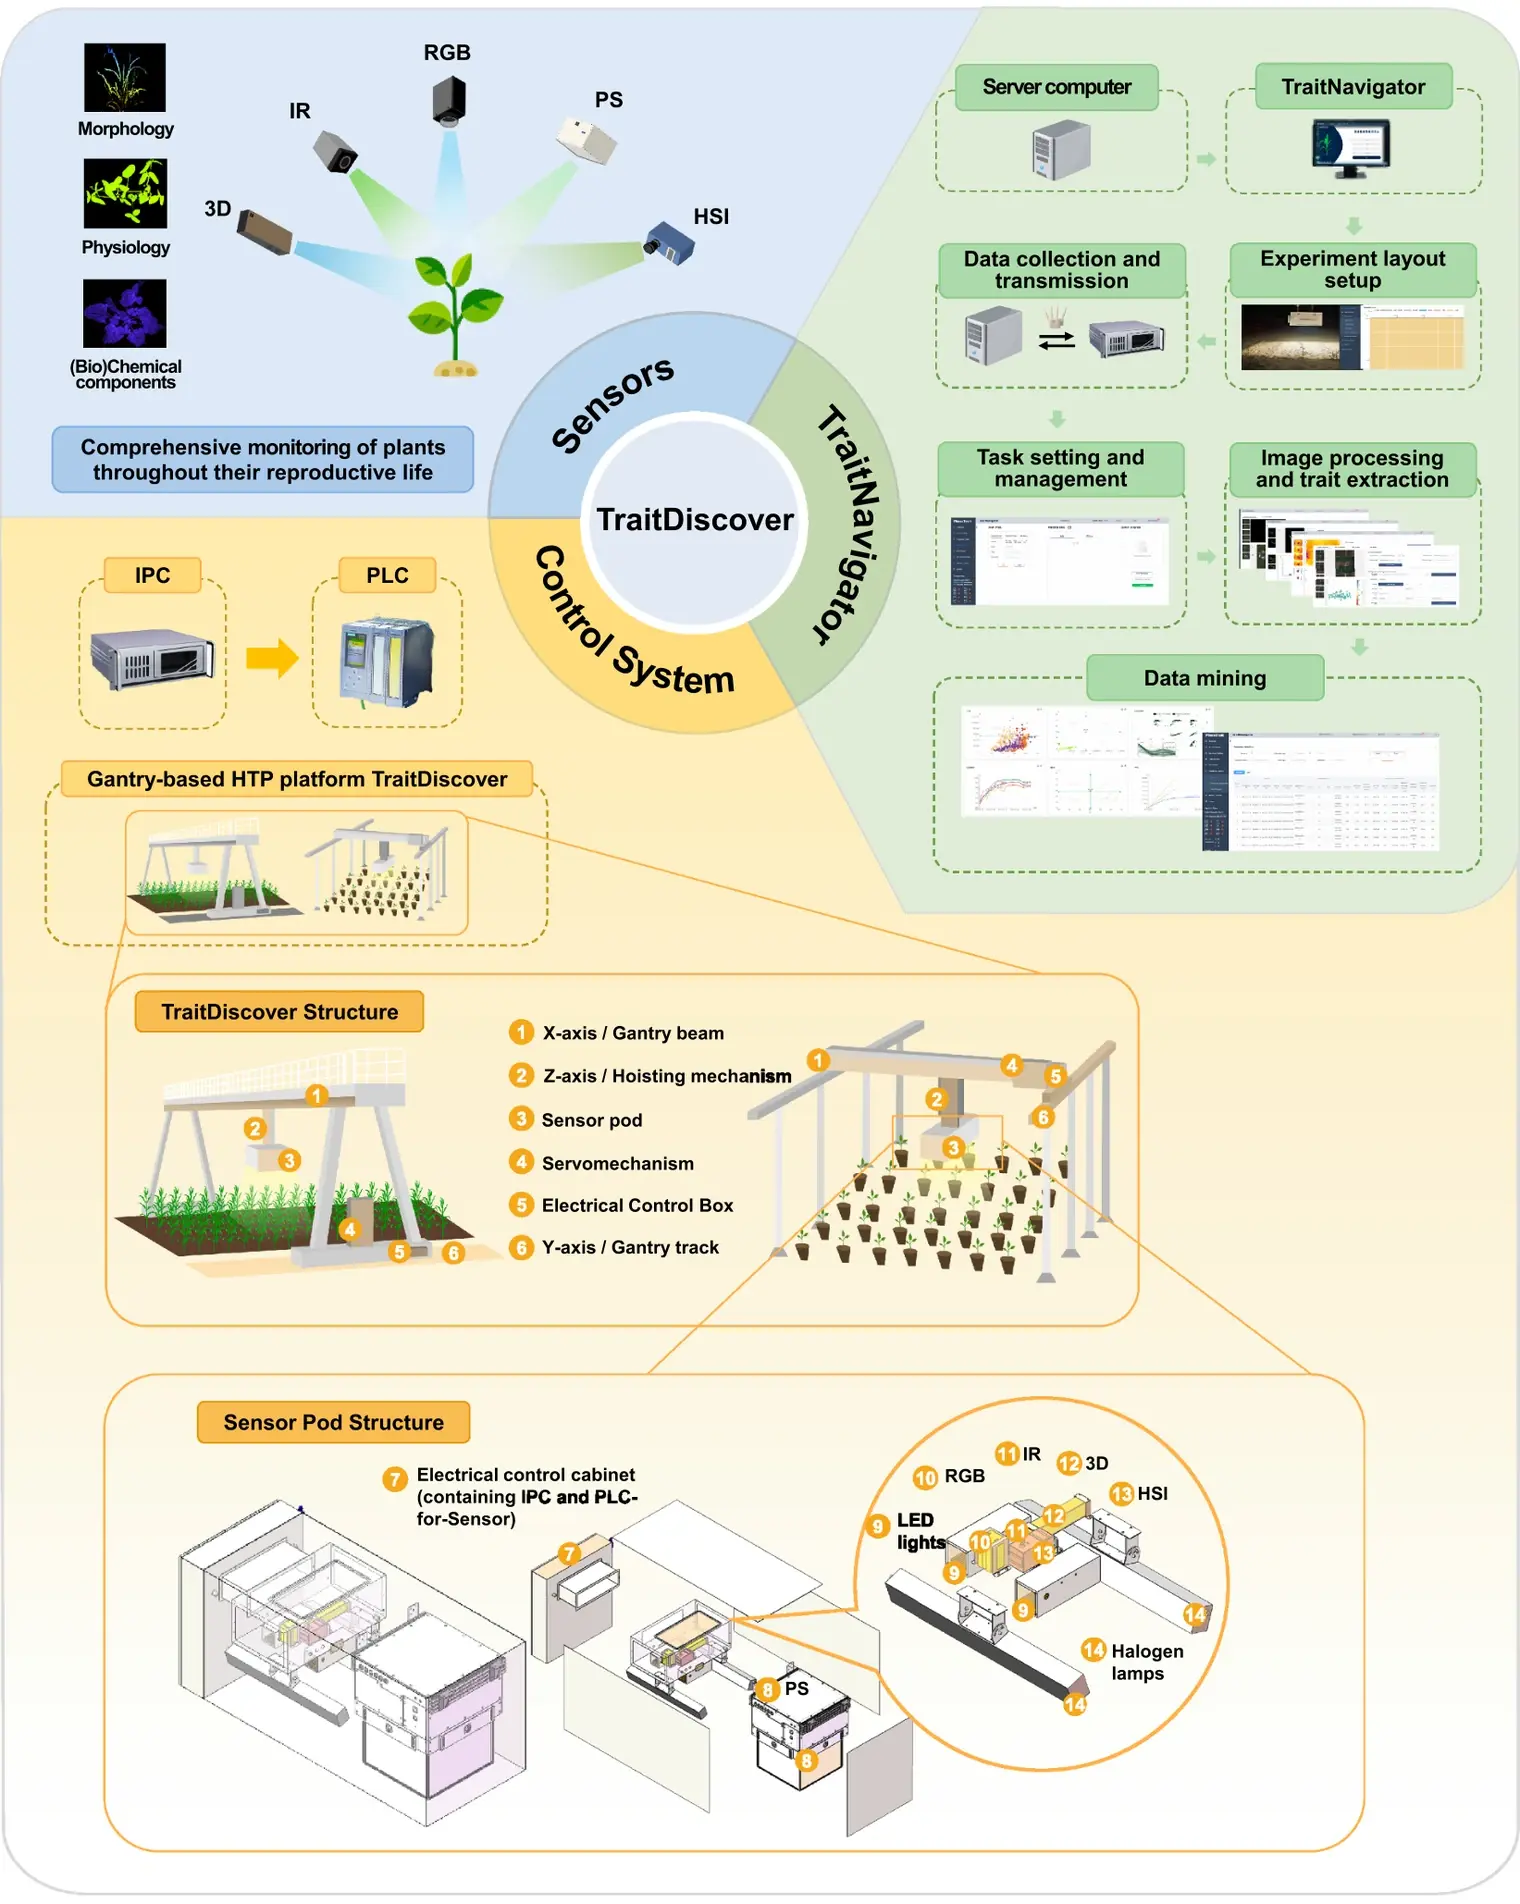
Рис. 1. Схема платформы TraitDiscover. Система объединяет (1) автоматизированную систему управления, включающую промышленный ПК, программируемый логический контроллер и портальную платформу высокопроизводительного фенотипирования, (2) датчики разных типов — RGB, IR, 3D, HSI и PS — и (3) веб-приложение TraitNavigator для управления экспериментом, сбора, анализа и визуализации данных в реальном времени.
Обозначения. Датчики: комплексный мониторинг растений в течение репродуктивного периода, морфология, физиология и (био)химический состав. TraitNavigator: сервер, настройка схемы эксперимента, сбор и передача данных, настройка заданий и управление ими, обработка изображений и извлечение признаков, интеллектуальный анализ данных. Система управления: IPC — промышленный ПК, PLC — программируемый логический контроллер. Узлы портальной платформы: 1 — ось X и балка портала, 2 — ось Z и подъёмный механизм, 3 — блок датчиков, 4 — сервомеханизм, 5 — электрический блок управления, 6 — ось Y и рельсовый путь портала. Узлы блока датчиков: 7 — шкаф управления с промышленным ПК и ПЛК для датчиков, 8 — PS, 9 — светодиодные осветители, 10 — RGB, 11 — IR, 12 — 3D, 13 — HSI, 14 — галогенные лампы.
2.2. Автоматизированная система управления
Автоматизированная система управления платформы TraitDiscover предназначена для высокоточного, полностью автоматизированного и высокопроизводительного фенотипирования в различных условиях. Она состоит из трёх основных компонентов: блока датчиков, трёхкоординатной системы перемещения и управляющей логики, координирующей выполнение заданий по сбору данных.
Блок датчиков (рис. 1) выполнен как единый узел и включает программируемый логический контроллер для датчиков (PLC-for-Sensor), промышленный персональный компьютер (IPC) и несколько датчиков фенотипирования. Чтобы учесть особенности движения, требуемого разными датчиками, и обеспечить съёмку при слабом освещении или ночью, разработали специализированный блок на основе следующих принципов.
1. Высокопроизводительная схема сбора данных. Датчики RGB, IR и 3D, допускающие синхронную съёмку, размещены в одной зоне для сокращения времени съёмки и повышения производительности.
2. Управляемое освещение. Чтобы исключить влияние нестабильного дневного освещения, платформа поддерживает полностью автоматизированное ночное фенотипирование. Блок RGB оборудован двумя широкополосными светодиодными матрицами, охватывающими диапазон от синего до красного, и оптическими рассеивателями для устранения теней и локально пересвеченных областей. Модуль HSI использует галогенную лампу полного спектра, обеспечивающую высокоточную спектральную съёмку полога при рабочем расстоянии 300–2000 мм.
3. Согласование полей зрения. Пространственные смещения между датчиками рассчитываются по параметрам их полей зрения для точного взаимного размещения.
4. Балансировка конструкции. Блок механически балансируют с учётом массы и габаритов датчиков, обеспечивая устойчивость во время движения.
Система перемещения включает программируемый логический контроллер позиционирования (PLC-for-Position) и трёхкоординатную портальную платформу, приводимую в движение высокоточными серводвигателями через зубчато-реечную передачу. Повторяемость позиционирования во всей рабочей зоне составляет ±1 мм. Ходы по осям X и Y можно масштабировать под разные размеры делянок для сканирования популяций растений на большой площади. По оси Z точно регулируют расстояние между датчиком и пологом для сохранения оптимальной фокусировки. Обмен данными между PLC-for-Position и бортовым IPC в реальном времени обеспечивает автоматический запуск каждого датчика и точную синхронизацию сбора фенотипических данных.
На рис. 2 показана замкнутая последовательность сбора данных. Приложение TraitNavigator, работающее на IPC, делит обследуемое поле на сетку и формирует оптимальный маршрут съёмки встроенным алгоритмом. IPC передаёт координаты перемещения контроллеру PLC-for-Position, который направляет портал в каждую заданную точку. По прибытии IPC получает подтверждение и даёт команду контроллеру PLC-for-Sensor запустить соответствующие датчики и зарегистрировать данные полога. Такой сквозной обмен подтверждениями обеспечивает полностью автоматизированное высокопроизводительное фенотипирование.
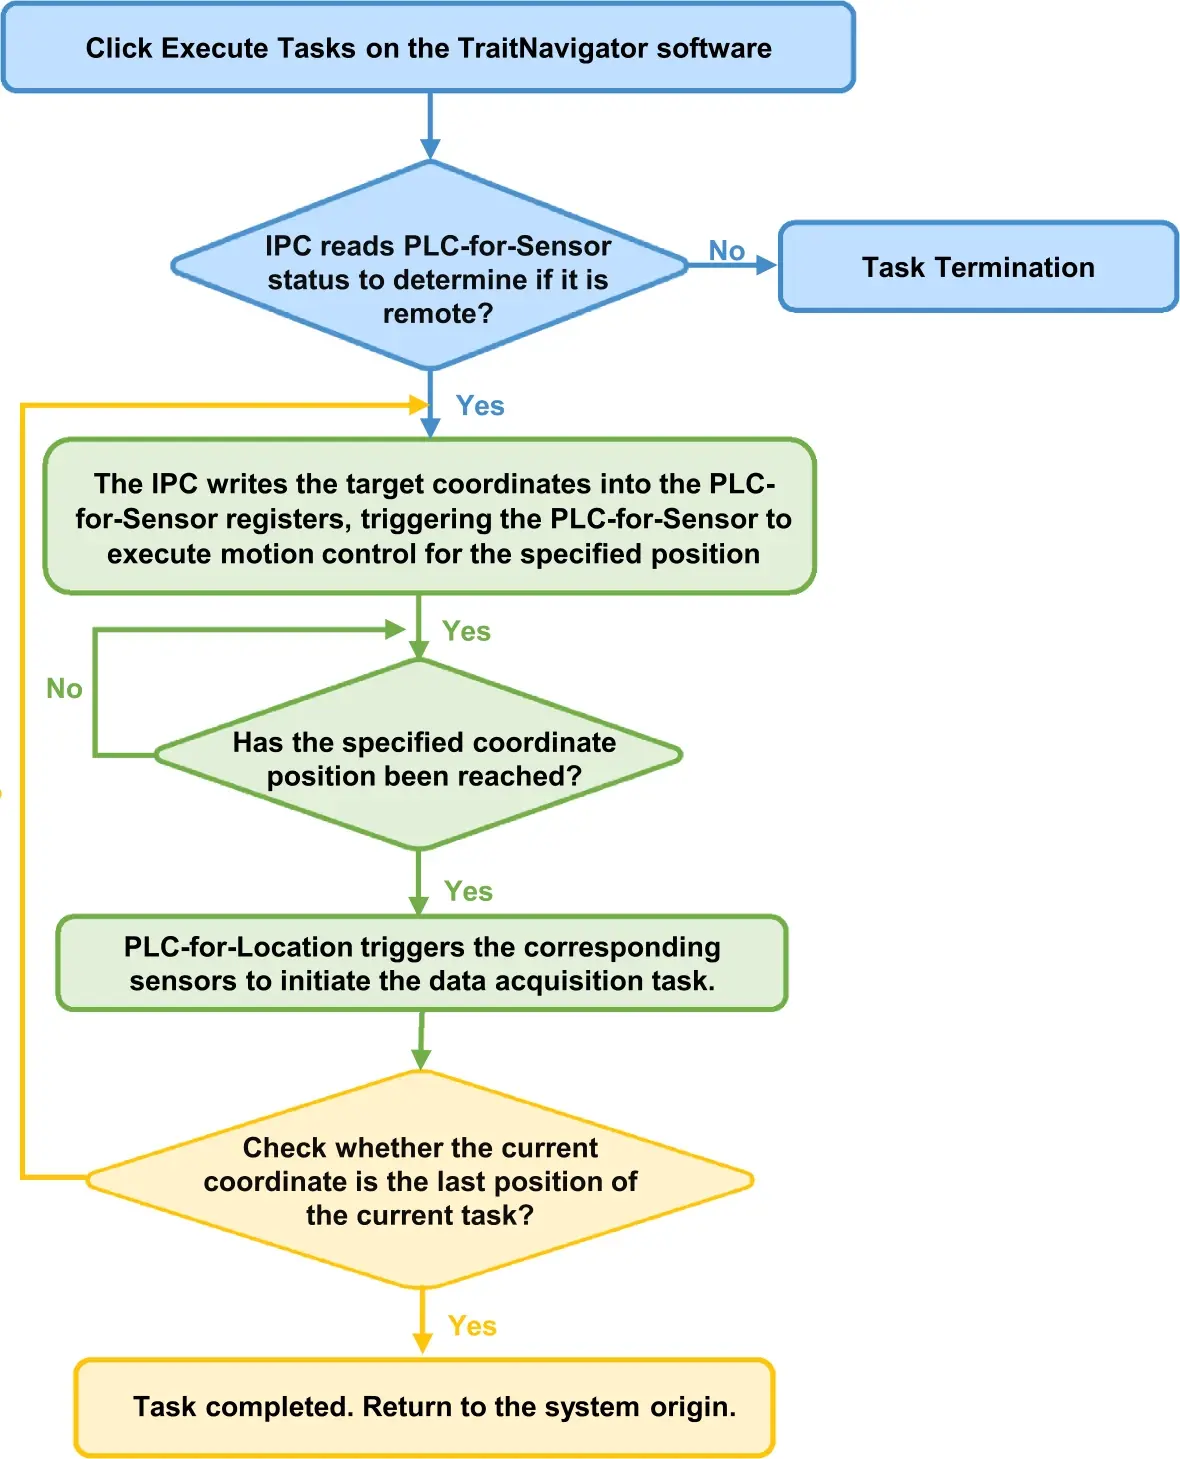
Рис. 2. Схема работы автоматизированной системы управления.
Обозначения. В TraitNavigator нажимают «Выполнить задания». IPC проверяет, находится ли PLC-for-Sensor в режиме дистанционного управления. Если нет, задание прекращается. Если да, IPC записывает целевые координаты в регистры PLC-for-Sensor, чтобы запустить перемещение в заданную позицию. Пока позиция не достигнута, проверка повторяется. По прибытии PLC-for-Location запускает соответствующие датчики для сбора данных. Далее проверяется, является ли текущая позиция последней для задания. Если нет, цикл повторяется для следующей позиции. Если да, задание завершается и система возвращается в начало координат.
2.3. Датчики мультимодального фенотипирования
Платформа TraitDiscover позволяет интегрировать модули мультимодальной съёмки RGB, IR, 3D, HSI и PS для комплексного мониторинга морфологического, физиологического и (био)химического состояния культур (рис. 3). RGB-съёмка регистрирует видимый диапазон с высоким разрешением и позволяет быстро и бесконтактно определять морфологические, цветовые и текстурные признаки, в том числе высоту растения, проективное покрытие полога и индекс хлорофилла [42–44]. IR-съёмка определяет температуру поверхности полога по его инфракрасному излучению, давая важную информацию о водном статусе растений и реакции на тепловой стресс [45,46]. Трёхмерные датчики — лазерные сканеры, лидары или системы стереозрения — формируют плотные облака точек, по которым с миллиметровой точностью определяют высоту и объём растений, углы наклона листьев и сложность их пространственной структуры [42]. HSI измеряет непрерывные спектры отражения в широком диапазоне длин волн и позволяет выявлять слабовыраженные физиологические изменения, связанные с заболеваниями, обеспеченностью питательными веществами и стрессовыми реакциями [47,48]. При визуализации фотосинтеза регистрируют флуоресценцию молекул хлорофилла после поглощения световой энергии. Она позволяет судить об эффективности фотосинтеза, стрессовых реакциях и общем физиологическом состоянии и выявлять биотический и абиотический стресс уже на ранней физиологической стадии [49–51].
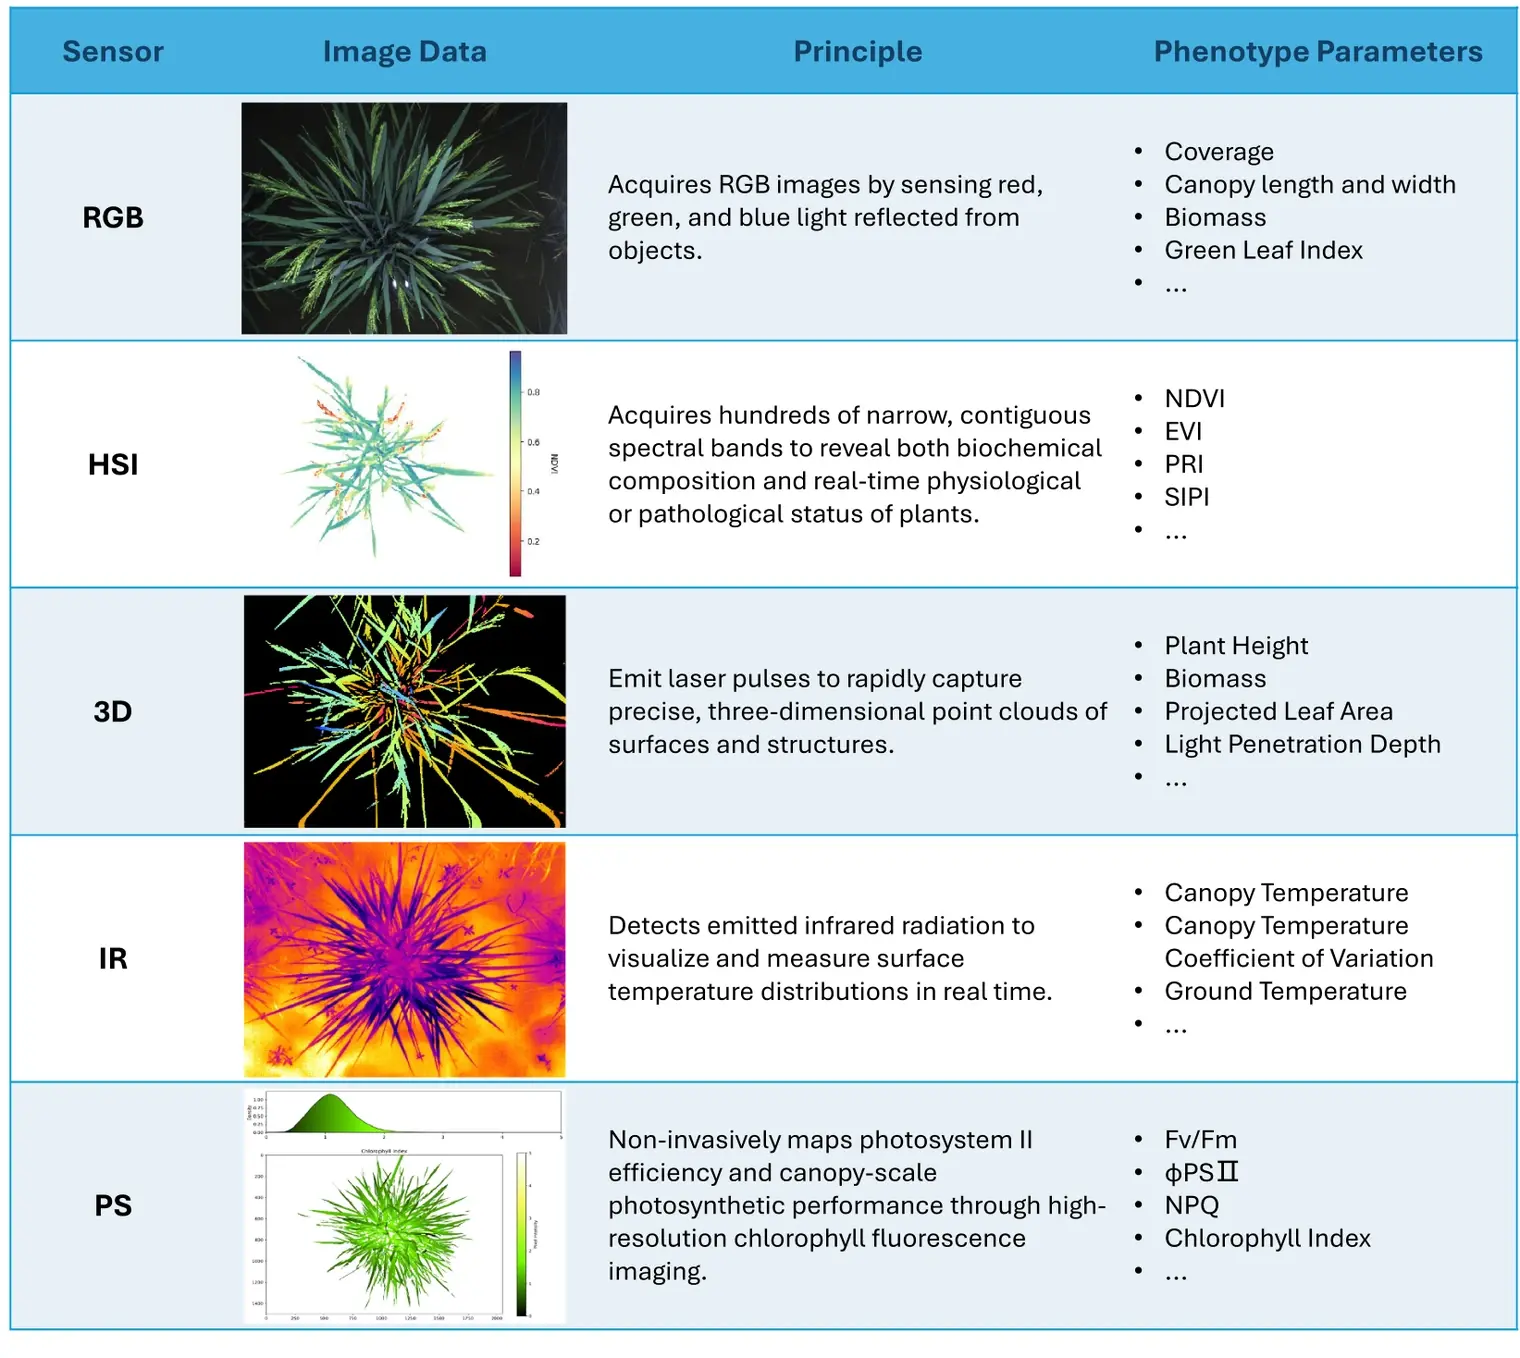
Рис. 3. Принципы формирования изображений датчиками RGB, HSI, 3D, IR и PS и соответствующие фенотипические параметры. Сокращения: NDVI — нормализованный разностный вегетационный индекс, EVI — улучшенный вегетационный индекс, PRI — фотохимический индекс отражения, SIPI — пигментный индекс, нечувствительный к структуре, Fᵥ/Fₘ — максимальная эффективность фотосинтеза, NPQ — нефотохимическое тушение.
Столбцы схемы: датчик, данные изображения, принцип работы, фенотипические параметры. RGB регистрирует отражённое красное, зелёное и синее излучение. Выходные параметры включают покрытие, длину и ширину полога, биомассу и индекс зелёного листа. HSI регистрирует сотни узких смежных спектральных каналов для определения биохимического состава и оценки физиологического или патологического состояния растений в реальном времени. Выходные параметры включают NDVI, EVI, PRI и SIPI. 3D-датчик испускает лазерные импульсы для быстрого получения точных облаков точек поверхностей и структур. Выходные параметры включают высоту растения, биомассу, площадь проекции листьев и глубину проникновения света. IR-датчик регистрирует собственное инфракрасное излучение объектов для визуализации и измерения распределения температуры поверхности в реальном времени. Выходные параметры включают температуру полога, коэффициент её вариации и температуру грунта. PS определяет эффективность фотосистемы II и фотосинтетические характеристики полога неинвазивно, посредством съёмки флуоресценции хлорофилла с высоким разрешением. Выходные параметры включают Fᵥ/Fₘ, ΦPSII, NPQ и индекс хлорофилла.
2.4. Состав программного комплекса TraitNavigator
TraitNavigator — веб-комплекс управления и анализа данных платформы TraitDiscover. Как показано на рис. 4, в состав программы входят модули проектирования схемы эксперимента, планирования заданий, обработки изображений и анализа данных.
2.4.1. Проектирование схемы эксперимента
Программа поддерживает многоуровневое пространственное деление экспериментальной зоны на полевые делянки, подделянки и отдельные учётные единицы. Это позволяет одной и той же платформе собирать данные как об отдельных растениях, так и о популяциях. Пользователь может визуально редактировать схему на каждом уровне, присваивать метки генотипа и варианта опыта и сразу синхронизировать цифровую схему с реальным полем. Калибровка координат одним действием согласует карту с координатами ПЛК с миллиметровой точностью, обеспечивая точное воспроизведение маршрутных точек, траекторий и динамических расписаний при повторных проходах.
2.4.2. Планирование заданий
TraitNavigator объединяет управление всеми датчиками и предусматривает два режима выполнения: по полностью автоматизированному расписанию и по ручной команде. Это позволяет проводить как периодические съёмки, так и отдельные измерения по запросу. Пользователь может выбрать любой отдельный датчик или сформировать собственную комбинацию датчиков. В частности, задания RGB, IR и 3D можно запускать одновременно, сокращая время съёмки и повышая производительность. Для обеспечения достоверности изображений предусмотрена калибровка. Блок RGB использует шкалу ColorChecker24 для баланса белого и цветокоррекции, а модуль HSI калибрует отражение с одновременной регистрацией белого эталона и тёмного тока, чтобы устранить дрейф системы и шум, связанный с внешними условиями. Панель мониторинга отслеживает ход выполнения заданий в реальном времени и сразу отмечает отклонения. Все задания, калибровки и метаданные регистрируются в журнале с поиском и фильтрацией по типу датчика, статусу передачи и позиции на схеме. Это обеспечивает полную прослеживаемость от исходной съёмки до итогового значения признака.
2.4.3. Обработка изображений
Обработка изображений лежит в основе высокоточного фенотипического анализа растений. После получения и передачи изображений на сервер система автоматически адаптирует схему обработки к масштабу материала — отдельным растениям, полевым делянкам или многоячеечным кассетам — и запускает специализированные алгоритмы. В режиме отдельного растения алгоритм автоматически находит центральный целевой экземпляр для фенотипирования с высоким разрешением. В режиме делянки он сегментирует весь полог и рассчитывает показатели популяции. В режиме кассеты он выделяет каждый проросток в ячейке для извлечения индивидуальных признаков. Все процедуры адаптируются к культуре. В ручном интерфейсе можно свободно менять параметры, включая области кадрирования, способ сегментации (DepthCropSeg, пользовательский порог и др.) и пороги обнаружения, с учётом культуры и схемы опыта. Описанные ниже алгоритмы применялись по умолчанию в проверочных экспериментах. Основные гиперпараметры доступны пользователям в TraitNavigator, а обработка реализована по модульной схеме (предобработка, сегментация, извлечение признаков), позволяющей при необходимости подставлять альтернативные методы. Для каждой модальности предусмотрена своя последовательность обработки.
• RGB и IR. Алгоритм DepthCropSeg [40] использует данные глубины, чтобы выделять растения на RGB- и IR-изображениях. RGB-модуль дополнительно использует PhenoNight [41] для надёжного ночного анализа. В IR-модуле для точного выделения растений можно использовать температурный контраст. После сегментации рассчитывают морфологические, цветовые и температурные признаки.
• 3D. Из сложных полевых облаков точек сначала удаляют точки поверхности грунта и шум, используя фильтрацию по гистограммам и анализ связных компонентов. По оставшимся точкам растений методом альфа-форм (Alpha-shape) реконструируют полигональную сетку для расчёта площади листьев, объёма и других трёхмерных морфологических параметров.
• HSI. По умолчанию исходные спектры отражения очищают от шума и сглаживают фильтром Савицкого—Голея (SG). При этом предполагается локальная гладкость спектров полога, позволяющая аппроксимировать их полиномами низкой степени по длине волны. В TraitNavigator можно менять размер окна и порядок полинома SG, а при необходимости работать с нефильтрованными спектрами — отключить сглаживание. Затем маскирование фона по нескольким вегетационным индексам выделяет пиксели полога без примеси фона. Это позволяет получить средние спектры и более 20 вегетационных индексов для оценки содержания (био)химических компонентов, включая NDVI, PRI и SIPI. Для опытных пользователей предобработка HSI реализована в виде подключаемого модуля. Это позволяет интегрировать альтернативные фильтры подавления шума или сглаживания без изменения остальной схемы сбора данных.
• PS. Из исходного информационного файла (INF) и файла данных (DAT), полученных по протоколам быстрой индукции флуоресценции хлорофилла a (OJIP) или импульсно-амплитудной модуляции (PAM), извлекают последовательности кадров. Маска по флуоресценции хлорофилла отделяет пиксели растений от фона. Дополнительная маска по максимальной эффективности фотосинтеза (Fᵥ/Fₘ) уточняет сегментацию по областям максимальной фотохимической эффективности. Обе маски поступают в общую схему обработки, которая вычисляет среднюю максимальную флуоресценцию (Fₘ), нефотохимическое тушение (NPQ), скорость переноса электронов (ETR), коэффициент фотохимического тушения (qP) и другие фотосинтетические показатели на уровне растения или популяции.
2.4.4. Анализ данных
Для работы с неоднородными данными из нескольких источников в исследованиях по высокопроизводительному фенотипированию TraitNavigator объединяет структурированную базу данных и интерактивные средства визуализации. Все записи иерархически индексируются по эксперименту, генотипу и варианту опыта, поэтому запросы к крупным наборам данных выполняются за миллисекунды. Динамические панели выводят квадрантные диаграммы, пузырьковые карты и графики временных рядов, позволяя обозревать динамику признаков за весь цикл роста. Эти функции предоставляют надёжные данные для изучения связей генотипа с фенотипом и принятия селекционных решений.
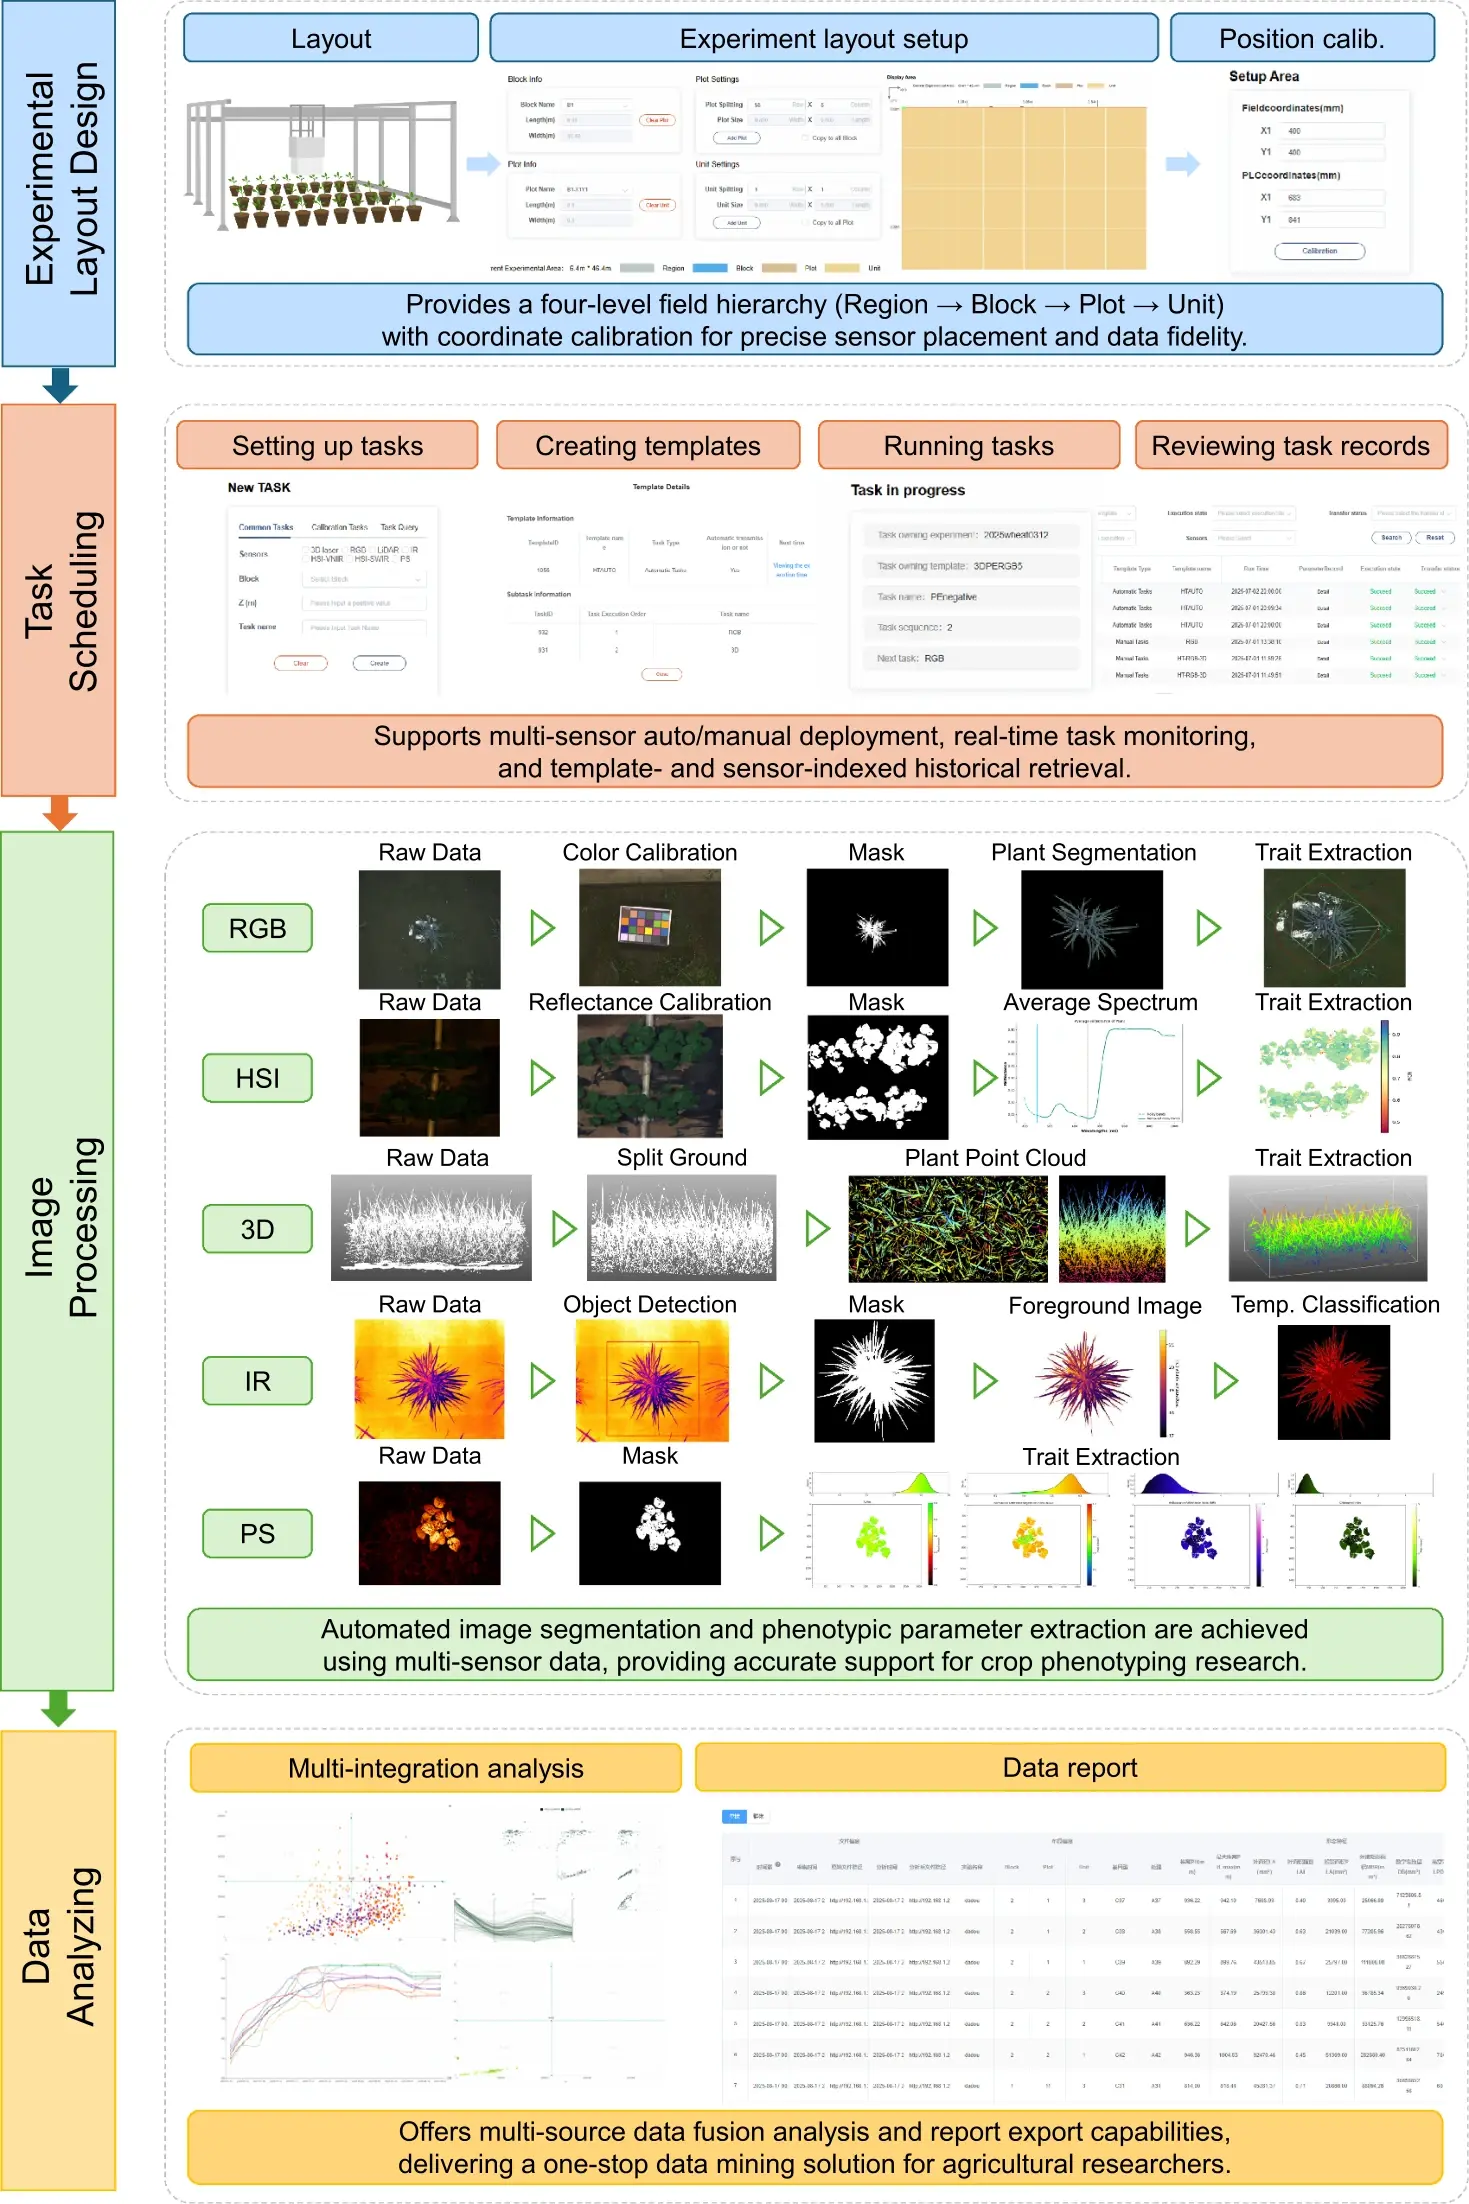
Рис. 4. Последовательность работы в TraitNavigator: от проектирования схемы эксперимента и планирования заданий до обработки изображений и анализа данных.
Обозначения. Проектирование схемы: компоновка, настройка схемы эксперимента и калибровка координат. Четырёхуровневая иерархия (зона → блок → делянка → единица) и калибровка обеспечивают точное позиционирование датчиков и достоверность данных. Планирование заданий: настройка заданий, создание шаблонов, запуск и просмотр журнала. Поддерживаются автоматический и ручной запуск нескольких датчиков, мониторинг в реальном времени и поиск в журнале по шаблонам и датчикам. Обработка изображений: RGB — исходные данные, калибровка цвета, маска, сегментация растения, извлечение признаков. HSI — исходные данные, калибровка отражения, маска, средний спектр, извлечение признаков. 3D — исходное облако точек, отделение грунта, облако точек растений, извлечение признаков. IR — исходные данные, обнаружение объекта, маска, изображение переднего плана, классификация по температуре. PS — исходные данные, маска, извлечение признаков. Автоматическая сегментация и извлечение параметров опираются на данные нескольких датчиков. Анализ данных: комплексный анализ и отчёт. Предусмотрены анализ объединённых данных из разных источников и экспорт отчётов.
2.5. План проверочных экспериментов
После описания интегрированной аппаратно-программной архитектуры TraitDiscover и возможностей многомерного сбора данных мы проверили применимость платформы в исследованиях стрессовых реакций культур на трёх примерах. Они демонстрируют автоматизированное фенотипирование и раннюю количественную оценку реакции на стресс. Эксперименты служили репрезентативной проверкой способности платформы формировать потоки данных для анализа G×E×P, без построения полноценной модели G×E×P.
2.5.1. Эксперимент по оценке устойчивости сои к засушливому стрессу
Сою сорта Long Zhong Huang 601 (LZH601) выращивали в горшках размером 23 × 22 см при естественном летнем освещении в июле и августе 2024 г. Прорастание и рост проходили при 22 °C днём и 16 °C ночью. Для выравнивания доступности питательных веществ после 20-го дня прекратили внесение раствора удобрений. Три режима полива — контроль (CK), слабая засуха и сильная засуха — распределили по схеме рандомизированных полных блоков в трёх повторностях. После равномерного насыщения субстрата водой при посеве контрольные горшки ежедневно поливали 400 мл водопроводной воды в 07:00 и 18:00. При слабой засухе в те же часы вносили 200 мл, при сильной засухе дальнейший полив прекратили. В период засушливого воздействия фенотипические данные PS собирали автоматически на платформе TraitDiscover в лаборатории MetaPheno (рис. 5A). В каждом варианте отобрали по три растения с однородным ростом. Регистрировали Fᵥ/Fₘ и индекс хлорофилла (Chl-index).
2.5.2. Эксперимент по определению устойчивости кукурузы к глифосату
Три селекционные линии кукурузы с разной чувствительностью к глифосату (HY925, FE931 и HY187) высеяли в 18-ячеечные кассеты размером 54 × 28 см и выращивали в автоматизированной теплице с регулируемой температурой и 14-часовым световым периодом (06:00–20:00). Для прорастания и роста в течение года поддерживали температуру 20–32 °C (днём ≤32 °C, ночью ≥20 °C). Расход воды при поливе составлял 10–300 мл/мин на растение. В каждую кассету вносили удобрение замедленного высвобождения. На стадии V3 (три полностью развёрнутых листа и видимый, ещё не развёрнутый центральный лист) глифосат наносили прецизионным штанговым опрыскивателем из расчёта 0,36 г действующего вещества на квадратный метр для равномерного покрытия листьев. Сформировали две группы: одну для контрольного опыта с обработкой глифосатом разных селекционных сортов, вторую — для контрольного опыта с обработкой глифосатом селекционных сортов и растений дикого типа. На тепличной платформе TraitDiscover компании Syngenta Seed Technology (China), Янлин, провинция Шэньси (рис. 5B), ежедневно выполняли автоматизированную съёмку RGB, HSI и PS. Для каждой кассеты определяли Fᵥ/Fₘ, NDVI и SIPI на 1-й, 2-й, 3-й и 4-й день после обработки глифосатом. Одновременно каждые 24 ч визуально оценивали и классифицировали повреждение кукурузы по его выраженности (рис. 6).
2.5.3. Эксперимент по анализу локальной адаптации риса
Отобрали семь сортов риса (табл. 1) и по географическому происхождению распределили их на три популяции: северную (N-pop), центральную (M-pop) и южную (S-pop). Для изучения локальной адаптации риса рассаду вырастили в конце апреля и пересадили в июне 2022 г. на три экспериментальные площадки с разными климатическими характеристиками: Чанчунь, провинция Цзилинь (CC, 42,90303° с. ш., 125,43116° в. д.), Чанпин, Пекин (CP, 40,09766° с. ш., 116,41115° в. д.), и Шифан, провинция Сычуань (SF, 31,11154° с. ш., 104,15499° в. д.). Таким образом воспроизвели разнообразие климата Китая с юга на север. Размеры опытных участков составляли соответственно 50,00 × 8,00 м, 48,00 × 8,00 м и 49,20 × 10,0 м. Чтобы исключить влияние плотности посадки на результаты, все сорта высаживали по единой схеме 80 × 80 см, по семь повторностей на сорт. Для уменьшения краевого эффекта предусмотрели один защитный ряд. На ключевых стадиях роста риса фенотипические данные собирали трёхмерными датчиками TraitDiscover (рис. 5C, D и E). С помощью TraitNavigator извлекали трёхмерные фенотипические признаки: высоту растения (PH), цифровую биомассу (DB), наклон листьев (LI), глубину проникновения света (LPD), площадь листьев (LA) и площадь проекции (PLA).
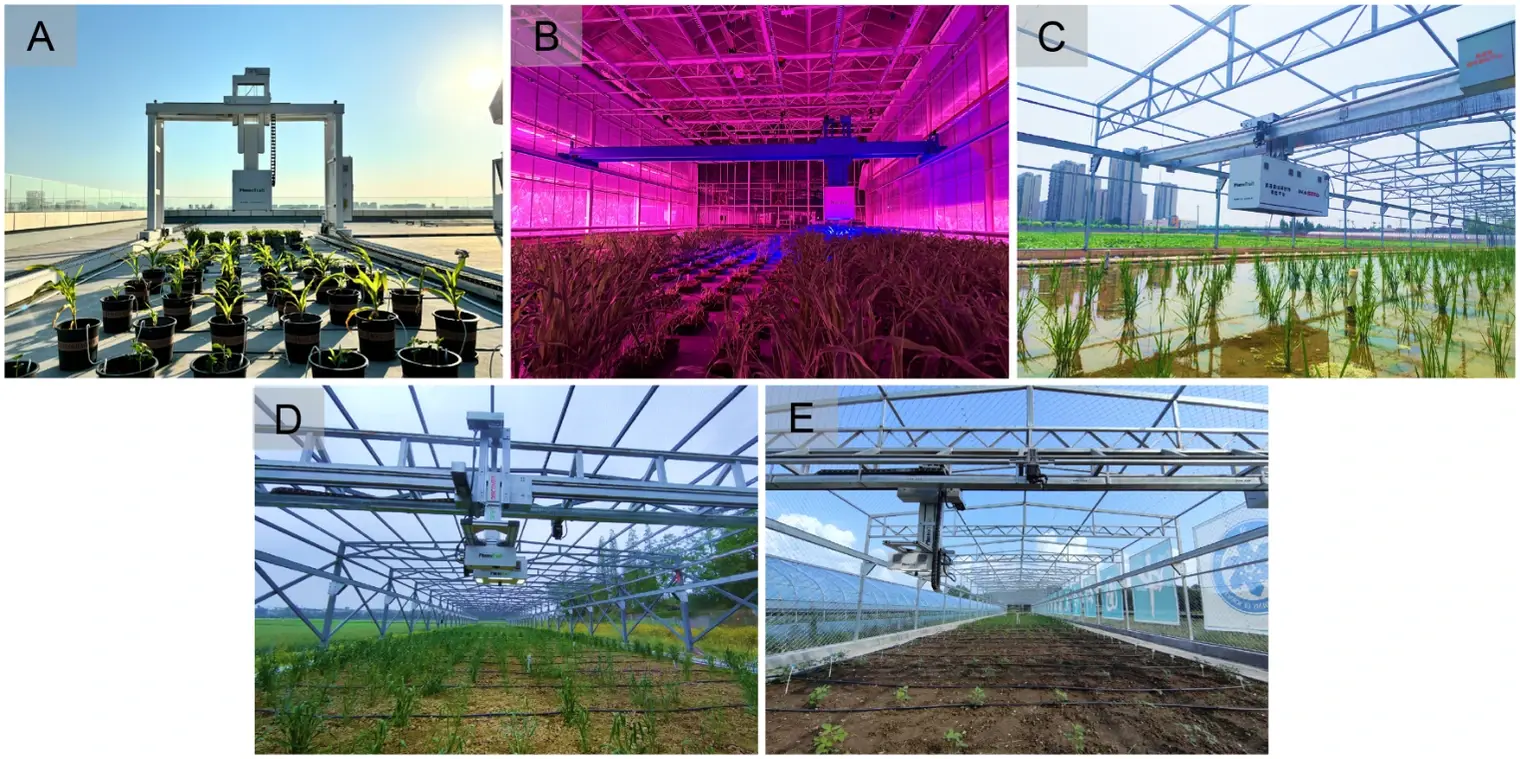
Рис. 5. Платформы TraitDiscover, использованные в исследовании. (A) Лаборатория MetaPheno, Шанхай. (B) Syngenta Seed Technology (China) Co., Ltd., Янлин. (C) Площадка в Чанпине, (D) площадка в Шифане и (E) площадка в Чанчуне Института генетики и биологии развития Китайской академии наук.
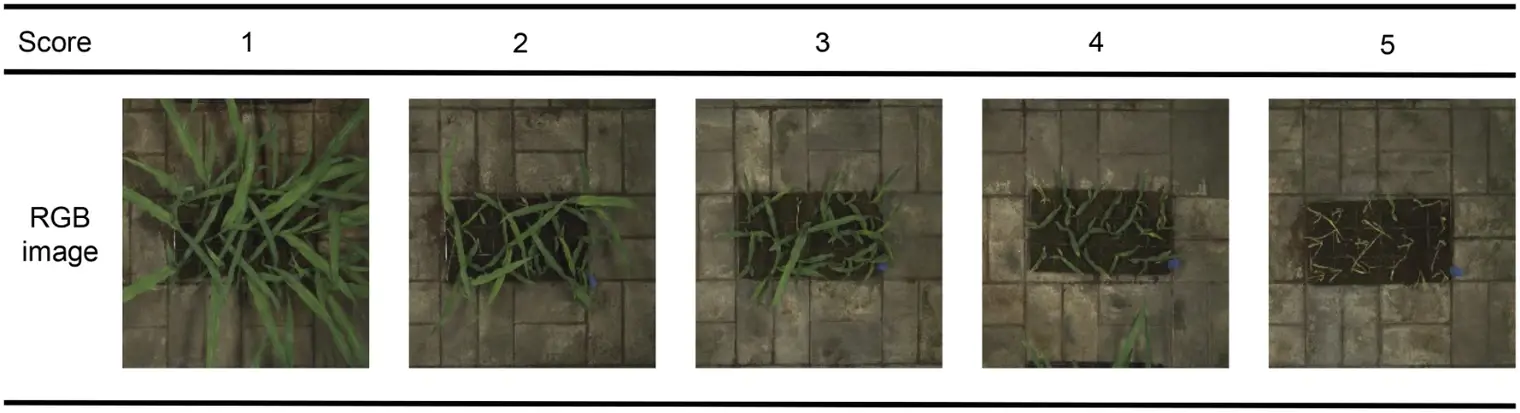
Рис. 6. Критерии оценки безопасности глифосата для кукурузы. 0 — растение здоровое, не отличается от необработанного контроля. 1 — слабые преходящие симптомы, ожидается полное восстановление в течение нескольких дней. 2 — временная задержка роста, имеются признаки восстановления. 3 — явное повреждение, частичное восстановление, вероятно стойкое угнетение. 4 — тяжёлое необратимое повреждение, растение выживает, но остаётся низкорослым. 5 — гибель растения.
Верхняя строка — балл повреждения, нижняя — примеры RGB-изображений.
Таблица 1. Сведения о сортах риса.
| № | Сорт | Подвид | Регион селекции | Популяция |
|---|---|---|---|---|
| 1 | Longjing31 | Japonica | Хэйлунцзян | Северная |
| 2 | Wushansimiao | Indica | Гуандун | Южная |
| 3 | Jiafuzhan | Indica | Фуцзянь | Южная |
| 4 | Runnong11 | Japonica | Шаньдун | Северная |
| 5 | Ezao6 | Japonica | Хубэй | Центральная |
| 6 | Baoxuan2 | Japonica | Гуанси | Южная |
| 7 | Wandao39 | Japonica | Аньхой | Центральная |
3. Результаты
3.1. Выявление засушливого стресса до появления симптомов по резкому снижению Fᵥ/Fₘ
Для оценки способности TraitDiscover выявлять стресс на самой ранней стадии мы подвергли сою контролируемому засушливому воздействию разной степени и ежедневно обследовали одни и те же растения методами RGB и PS (рис. 7A). RGB-съёмка показала отчётливую динамику морфологических реакций. В день 0 растения контрольного варианта (CK), слабой и сильной засухи имели однородный зелёный полог с полностью развёрнутыми листьями, что подтверждало одинаковое исходное состояние. К 4-му дню контрольные растения сохраняли пышный полог и вертикальное положение листьев, тогда как при слабой засухе наблюдались небольшое сокращение полога и слабое скручивание листьев. При сильной засухе полог заметно уменьшался, а увядание было широко распространено. При этом листья оставались зелёными, что свидетельствовало об отсутствии деградации хлорофилла и о том, что морфологические изменения предшествовали потере пигмента.
По данным PS-съёмки изучили вызванные засухой изменения Fᵥ/Fₘ и индекса хлорофилла по сравнению с хорошо обеспеченным водой контролем (рис. 7A). В день 0 во всех вариантах карты флуоресценции были однородно зелёными, а Fᵥ/Fₘ составляло около 0,8, что указывало на нормальное функционирование фотосистемы II (ФСII). На 4-й день контрольные растения сохраняли более высокое Fᵥ/Fₘ, а в вариантах слабой и сильной засухи показатель начал заметно снижаться, что свидетельствовало о выраженном ингибировании ФСII. Снижение Fᵥ/Fₘ было наиболее выражено у листьев верхнего яруса, что согласуется с ограниченным переносом воды от корней к побегам и более высокой интенсивностью падающего излучения в верхней части листьев. Оба фактора усугубляют фотоингибирование и ускоряют повреждение ФСII при дефиците воды. С усилением засухи значения в контроле оставались стабильными, тогда как при слабой и сильной засухе Fᵥ/Fₘ последовательно снижалось (рис. 7B), подтверждая возможность выявить эти различия уже на 4-й день.
Одновременный анализ спектрального индекса показал, что на 4-й день индекс хлорофилла не различался между вариантами (рис. 7C). Это указывает на то, что кратковременная засуха ещё не привела к изменению содержания хлорофилла. Следовательно, нарушение фотосинтетической функции происходит раньше деградации пигментов хлоропластов и раньше проявления любых различий, определяемых по простым показателям зелёной окраски. Таким образом, TraitDiscover выявляет засушливый стресс на более ранней физиологической стадии, чем традиционные методы оценки по морфологии или пигментам. Платформа обеспечивает высокую временную чувствительность и детальное пространственное разрешение внутри полога и перспективна для досимптомной диагностики засухи. Числовые значения и показатели ошибок, приведённые на рисунке, представлены в табл. 2.
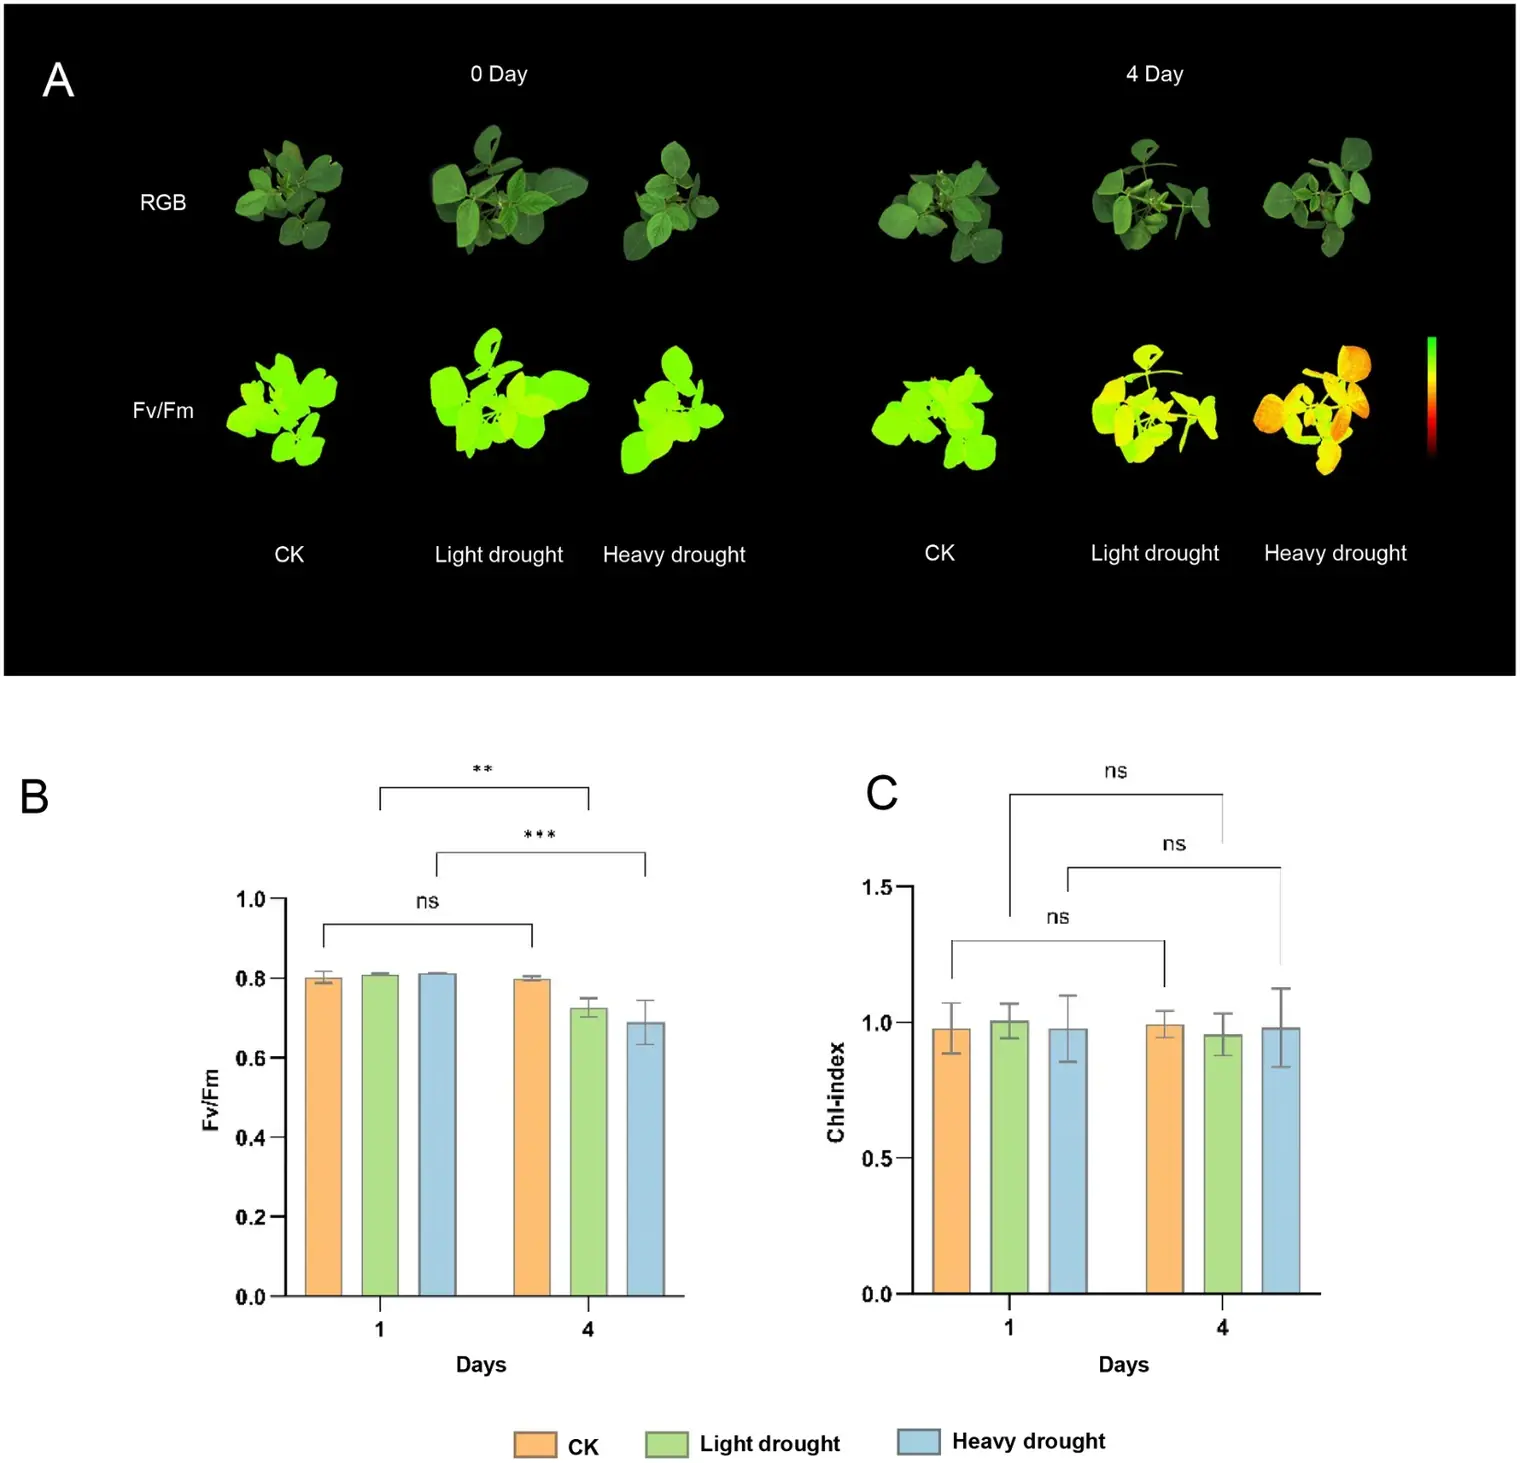
Рис. 7. Реакция растений сои в трёх вариантах опыта: контроль (CK), слабая засуха и сильная засуха. (A) RGB-изображения и карты максимальной эффективности фотосинтеза (Fᵥ/Fₘ), полученные в дни 0 и 4. (B) Количественный анализ Fᵥ/Fₘ в дни 0 и 4. (C) Количественный анализ индекса хлорофилла (Chl-index) в дни 0 и 4.
Обозначения: CK — контроль, Light drought — слабая засуха, Heavy drought — сильная засуха, Days — дни, ns — различие статистически незначимо. Сохранены отметки значимости и исходное обозначение дней на панелях.
Таблица 2. Реакция растений сои в трёх вариантах опыта: контроль (CK), слабая засуха и сильная засуха.
| Параметр | День | Контроль | Слабая засуха | Сильная засуха |
|---|---|---|---|---|
| Fᵥ/Fₘ | 1 | 0,802 ± 0,012 (n = 3) | 0,810 ± 0,002 (n = 3) | 0,813 ± 0,001 (n = 3) |
| Fᵥ/Fₘ | 4 | 0,799 ± 0,005 (n = 3) | 0,726 ± 0,019 (n = 3) | 0,688 ± 0,045 (n = 3) |
| Chl-index | 1 | 0,979 ± 0,076 (n = 3) | 0,988 ± 0,052 (n = 3) | 0,836 ± 0,099 (n = 3) |
| Chl-index | 4 | 0,994 ± 0,040 (n = 3) | 0,871 ± 0,063 (n = 3) | 1,045 ± 0,118 (n = 3) |
3.2. Диагностика повреждения глифосатом на 24 ч раньше по Fᵥ/Fₘ и спектральным индексам
Используя синхронизированную мультимодальную съёмку TraitDiscover, мы наблюдали вызванный глифосатом стресс у трёх сортов кукурузы (HY925, FE931 и HY187). На 2-й день по RGB-изображениям видимые повреждения отсутствовали во всех обработанных глифосатом вариантах (Modified-HT), а балльные оценки повреждения, выставленные вручную, не отличались от необработанного контроля (Modified-CK). Это подтверждает низкую чувствительность обычной визуальной оценки на столь ранней стадии (рис. 8A). При визуализации фотосинтеза, напротив, отмечено резкое падение Fᵥ/Fₘ с 0,80 (Modified-CK) до 0,76. Показатель продолжал снижаться до 3-го дня, а затем стабилизировался примерно на уровне 0,70. Это отражает начальное закрытие реакционных центров ФСII под действием стресса и последующую стабилизацию за счёт регуляции по мере активации механизмов фотозащиты и восстановления (рис. 8B).
Гиперспектральная съёмка дала дополнительные сведения о физиологических изменениях (рис. 8B). Существенное снижение NDVI на 3,5 % зарегистрировали только на 3-й день. Это показывает, что изменения эффективности ФСII (Fᵥ/Fₘ) опередили структурную деградацию полога на 24 ч. Временный рост SIPI в первые 48 ч отражает начальное накопление фотозащитных пигментов ксантофиллового цикла, например зеаксантина и антераксантина, которое временно повышает отношение каротиноидов к хлорофиллу [52,53]. При длительном стрессе начинается фотообесцвечивание хлорофилла, и к 3-му дню SIPI резко снижается. В совокупности эта динамика подтверждает, что обратимое закрытие реакционных центров ФСII является самым ранним обнаруживаемым признаком воздействия глифосата. За ним следует изменение содержания фотозащитных пигментов, и лишь затем наблюдается измеримая потеря хлорофилла. При гербицидном стрессе функциональные нарушения, таким образом, предшествуют структурным. Совместная обработка RGB, PS и HSI позволяет обнаружить стресс от глифосата на 24 ч раньше визуальной оценки, что подтверждает применимость TraitDiscover для быстрого высокопроизводительного скрининга безопасности гербицидов. Числовые значения и показатели ошибок, приведённые на рисунке, представлены в табл. 3.
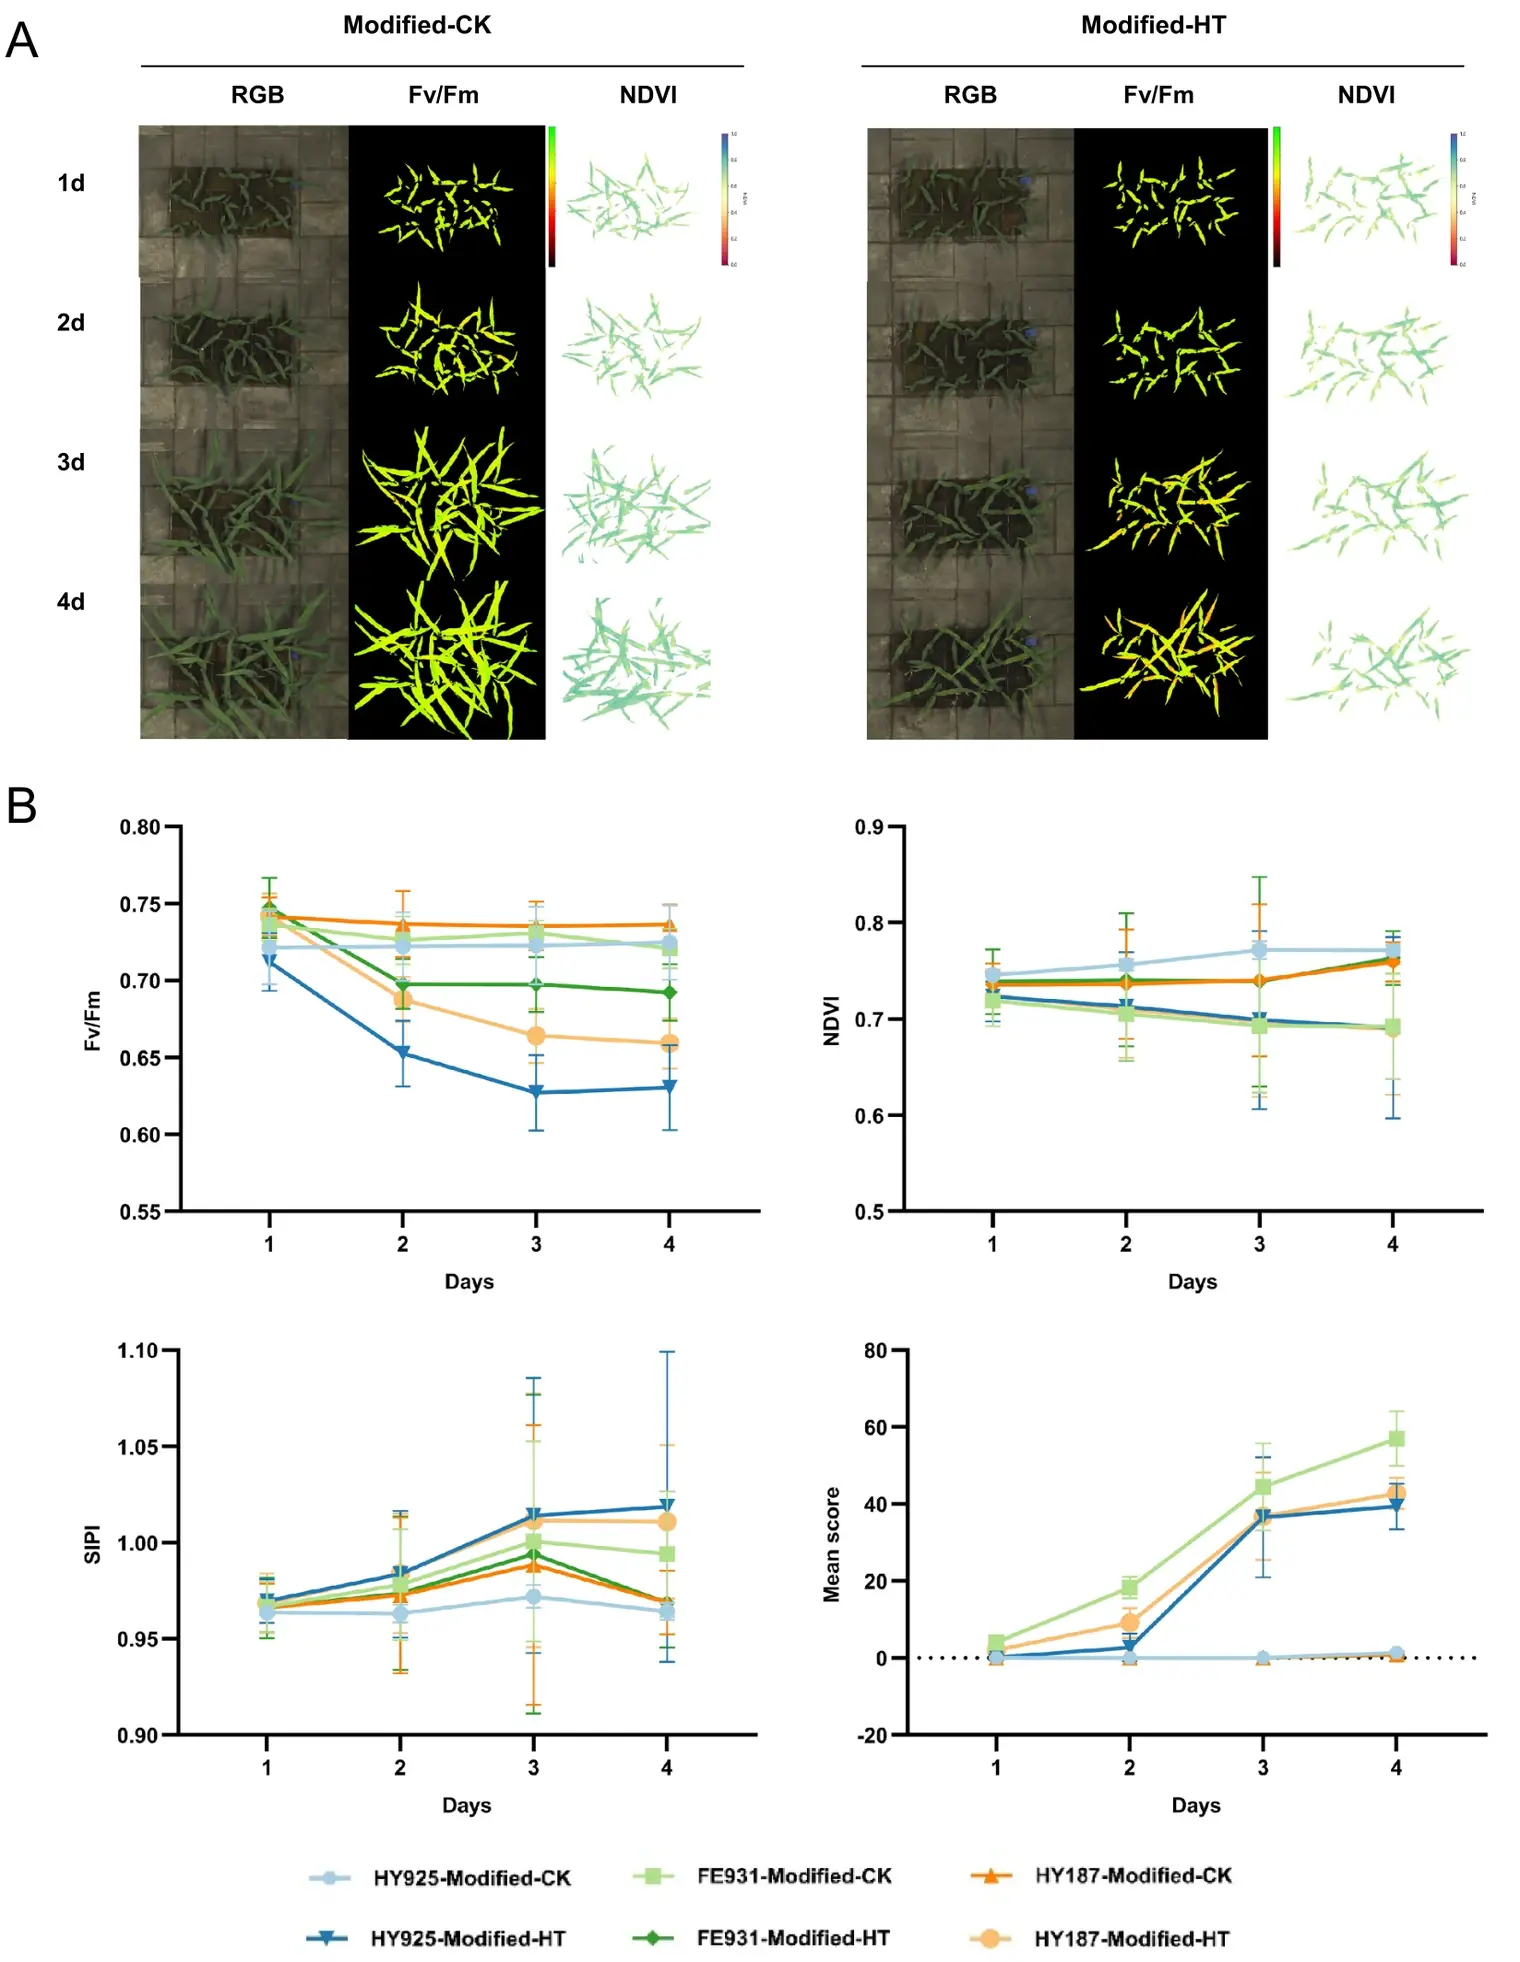
Рис. 8. Ранние физиологические и фенотипические реакции модифицированной кукурузы на стресс от глифосата. (A) Динамика RGB-изображений, карт Fᵥ/Fₘ и NDVI у разных сортов модифицированной кукурузы в группе, обработанной глифосатом (Modified-HT), и в необработанной контрольной группе (Modified-CK) с 1-го по 4-й день после внесения глифосата. (B) Временные профили Fᵥ/Fₘ, NDVI и SIPI и результаты ручной оценки повреждения глифосатом у сортов модифицированной кукурузы в обработанной и необработанной контрольной группах.
Обозначения: Days — дни после обработки, Mean score — средний балл повреждения. Коды HY925, FE931 и HY187 обозначают изученные линии. Modified-CK — необработанный контроль, Modified-HT — обработка глифосатом.
Таблица 3. Физиологические и спектральные показатели в разных вариантах опыта.
| Параметр | День | HY925 Modified-CK | FE931 Modified-CK | HY187 Modified-CK | HY925 Modified-HT | FE931 Modified-HT | HY187 Modified-HT |
|---|---|---|---|---|---|---|---|
| Fᵥ/Fₘ | 1 | 0,721 ± 0,024 (n = 22) | 0,736 ± 0,011 (n = 21) | 0,741 ± 0,012 (n = 10) | 0,711 ± 0,018 (n = 43) | 0,747 ± 0,019 (n = 44) | 0,741 ± 0,014 (n = 20) |
| Fᵥ/Fₘ | 2 | 0,722 ± 0,022 (n = 22) | 0,726 ± 0,015 (n = 21) | 0,736 ± 0,021 (n = 10) | 0,652 ± 0,021 (n = 43) | 0,697 ± 0,016 (n = 44) | 0,687 ± 0,014 (n = 20) |
| Fᵥ/Fₘ | 3 | 0,723 ± 0,025 (n = 22) | 0,730 ± 0,008 (n = 21) | 0,735 ± 0,015 (n = 10) | 0,626 ± 0,024 (n = 43) | 0,697 ± 0,017 (n = 44) | 0,664 ± 0,017 (n = 20) |
| Fᵥ/Fₘ | 4 | 0,725 ± 0,024 (n = 22) | 0,720 ± 0,013 (n = 21) | 0,736 ± 0,013 (n = 10) | 0,631 ± 0,027 (n = 43) | 0,692 ± 0,018 (n = 44) | 0,659 ± 0,016 (n = 20) |
| Средний балл | 1 | 0 ± 0 (n = 22) | 4 ± 1,855 (n = 21) | 0 ± 0 (n = 10) | 0,143 ± 0,745 (n = 43) | 0 ± 0 (n = 44) | 2 ± 2,276 (n = 20) |
| Средний балл | 2 | 0 ± 0 (n = 22) | 18,256 ± 2,829 (n = 21) | 0 ± 0 (n = 10) | 2,714 ± 3,607 (n = 43) | 0 ± 0 (n = 44) | 9,091 ± 3,883 (n = 20) |
| Средний балл | 3 | 0 ± 0 (n = 22) | 44,418 ± 11,268 (n = 21) | 0 ± 0 (n = 10) | 36,571 ± 15,574 (n = 43) | 0 ± 0 (n = 44) | 36,818 ± 11,336 (n = 20) |
| Средний балл | 4 | 1,404 ± 0,608 (n = 22) | 56,95736 ± 7,045 (n = 21) | 0,912 ± 0,675 (n = 10) | 39,380 ± 5,943 (n = 43) | 0,757 ± 0,428 (n = 44) | 42,727 ± 4,052 (n = 20) |
| NDVI | 1 | 0,746 ± 0,006 (n = 22) | 0,718 ± 0,026 (n = 21) | 0,735 ± 0,022 (n = 10) | 0,723 ± 0,025 (n = 43) | 0,738 ± 0,033 (n = 44) | 0,724 ± 0,027 (n = 20) |
| NDVI | 2 | 0,756 ± 0,006 (n = 22) | 0,705 ± 0,048 (n = 21) | 0,736 ± 0,056 (n = 10) | 0,712 ± 0,056 (n = 43) | 0,740 ± 0,069 (n = 44) | 0,709 ± 0,051 (n = 20) |
| NDVI | 3 | 0,772 ± 0,009 (n = 22) | 0,693 ± 0,069 (n = 21) | 0,740 ± 0,078 (n = 10) | 0,698 ± 0,092 (n = 43) | 0,738 ± 0,108 (n = 44) | 0,697 ± 0,078 (n = 20) |
| NDVI | 4 | 0,771 ± 0,005 (n = 22) | 0,692 ± 0,055 (n = 21) | 0,759 ± 0,020 (n = 10) | 0,690 ± 0,094 (n = 43) | 0,763 ± 0,027 (n = 44) | 0,688 ± 0,067 (n = 20) |
| SIPI | 1 | 0,964 ± 0,003 (n = 22) | 0,966 ± 0,013 (n = 21) | 0,966 ± 0,012 (n = 10) | 0,969 ± 0,011 (n = 43) | 0,966 ± 0,015 (n = 44) | 0,968 ± 0,015 (n = 20) |
| SIPI | 2 | 0,963 ± 0,005 (n = 22) | 0,978 ± 0,028 (n = 21) | 0,972 ± 0,040 (n = 10) | 0,983 ± 0,032 (n = 43) | 0,973 ± 0,039 (n = 44) | 0,983 ± 0,031 (n = 20) |
| SIPI | 3 | 0,971 ± 0,006 (n = 22) | 1,001 ± 0,050 (n = 21) | 0,988 ± 0,072 (n = 10) | 1,013 ± 0,071 (n = 43) | 0,993 ± 0,082 (n = 44) | 1,011 ± 0,065 (n = 20) |
| SIPI | 4 | 0,964 ± 0,004 (n = 22) | 0,994 ± 0,032 (n = 21) | 0,968 ± 0,016 (n = 10) | 1,018 ± 0,081 (n = 43) | 0,968 ± 0,023 (n = 44) | 1,011 ± 0,039 (n = 20) |
3.3. Разграничение эффектов генотипа и среды по данным трёхмерной феномики на нескольких площадках
3.3.1. Различия фенотипических признаков риса в разных условиях среды
Эксперимент с пересадкой растений на несколько площадок с использованием TraitDiscover выявил отчётливые различия в архитектуре риса, связанные с воздействием среды. Их было бы трудно количественно охарактеризовать только традиционными измерениями высоты или урожайности. Как показано на рис. 9, показатели центральной популяции (M-pop) были относительно сходными в Чанчуне и Чанпине, что указывает на стабильную реакцию на изменение условий среды. При переносе северной популяции (N-pop) на юг PH и LPD уменьшались, а индекс листовой поверхности (LAI) и наклон листьев (LI) существенно увеличивались. При переносе южной популяции (S-pop) на север наблюдалась противоположная тенденция. Результаты отражают выраженную локальную адаптацию разных популяций риса к различным условиям среды и подчёркивают регулирующую роль факторов среды в росте и развитии риса.
Подробный морфологический анализ дополнительно выявил различия. У риса, выращенного в Чанчуне и Чанпине, наблюдались сходные значения PH, LAI, LI, LPD и PLA. У растений из Шифана PH, DB и PLA были существенно ниже, а LAI и LI заметно выше. Это указывает на то, что в Чанпине и Чанчуне растения были выше и формировали более широкий полог, тогда как в Шифане растения были ниже, листья располагались более вертикально, полог был уже, а глубина проникновения света — меньше. Эти закономерности могут быть связаны с более коротким фотопериодом в Шифане, который способен вызвать раннее цветение и сократить вегетативную фазу, ограничивая рост. Кроме того, низкая освещённость в Шифане может стимулировать более вертикальное положение листьев, улучшая проникновение света через полог к нижним листьям и повышая эффективность фотосинтеза [54,55]. По сравнению с традиционным фенотипированием на одной площадке или на основе двумерных данных этот трёхмерный подход на нескольких площадках даёт более детальное представление о влиянии местного климата на архитектуру полога разных популяций.
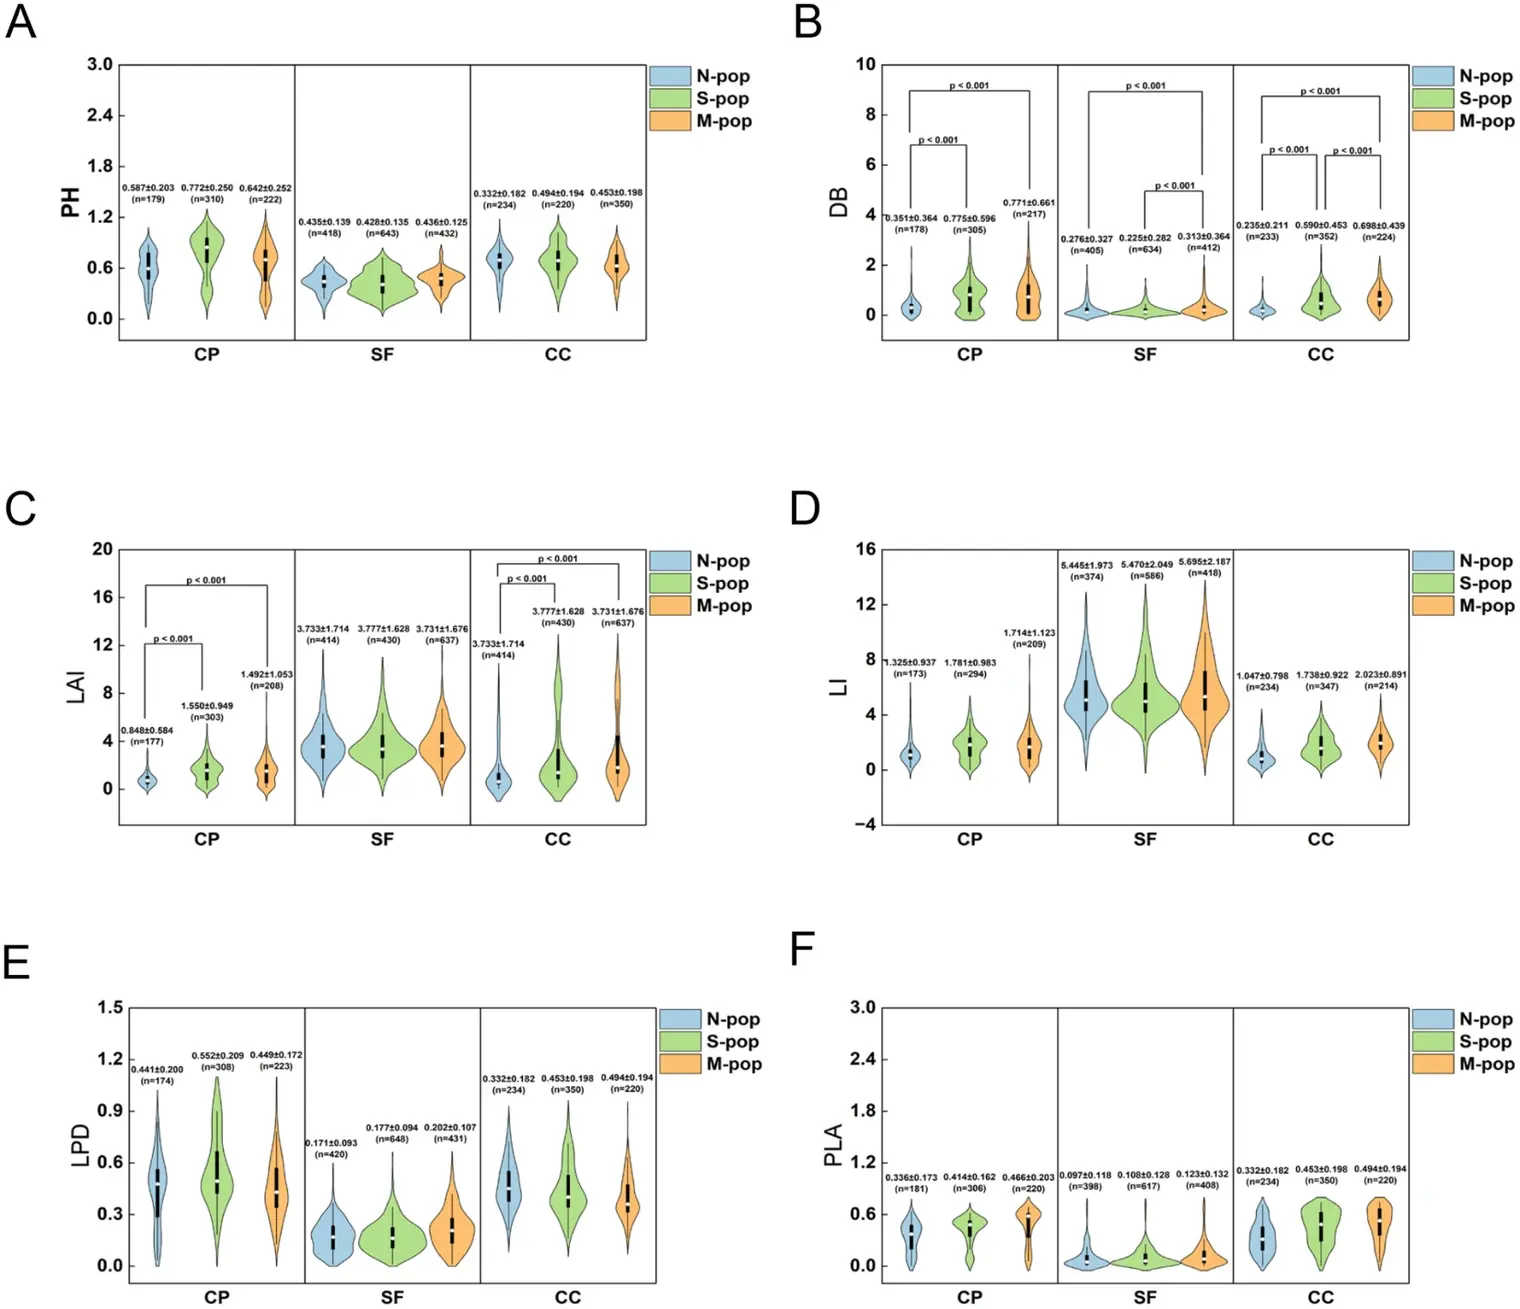
Рис. 9. Фенотипическое расхождение северной (N-pop), центральной (M-pop) и южной (S-pop) популяций риса в условиях трёх площадок: Чанчунь (CC), Чанпин (CP) и Шифан (SF). (A) Высота растения (PH). (B) Цифровая биомасса (DB). (C) Индекс листовой поверхности (LAI). (D) Наклон листьев (LI). (E) Глубина проникновения света (LPD). (F) Площадь проекции листьев (PLA).
3.3.2. Различия фенотипических признаков разных сортов риса в одинаковых условиях
На рис. 10 приведены гистограммы плотности распределения основных признаков семи сортов риса в одинаковых макроусловиях, показывающие влияние генетического фона на проявление фенотипа. Сорт Ezao6 на разных площадках характеризуется более высокими LI, LAI и DB. Вертикальное положение листьев и хорошее проникновение света в нижнюю часть полога также позволяют уменьшить избыточную транспирацию. Более высокая цифровая биомасса отражает лучшую способность перехватывать падающее световое излучение. Сорта Longjing31 и Runnong11 демонстрируют относительно стабильные фенотипические признаки на разных площадках, с небольшим разбросом и хорошей адаптацией к условиям среды. В Чанпине у Wushansimiao умеренные LAI и LI, однако меньшая LPD и несколько более плотный полог. В Шифане значения LI и LPD ниже, из-за чего полог более сомкнут.
Комплексный анализ показывает, что при одинаковых условиях выращивания максимумы распределений нескольких признаков различаются между сортами, следовательно, генетические факторы служат важным источником изменчивости признаков в одной среде. Кроме того, у одного и того же сорта разброс значений в Чанпине и Чанчуне выше, а показатели отдельных растений заметно отклоняются от среднего. В Шифане распределения признаков более концентрированные, что указывает на более выраженную локальную адаптацию. В эксперименте по пересадке растений на несколько площадок ранжирование генотипов по признакам размера полога, таким как PH, DB и PLA, оставалось стабильным между Чанчунем и Чанпином. В то же время признаки, связанные с углом наклона листьев (LI, LAI и LPD), демонстрировали наиболее выраженные и систематические изменения между площадками. Таким образом, распределения признаков показывают, что размер полога генетически стабилизирован, а наклон листьев обеспечивает основную фенотипическую пластичность. Разброс максимален на площадках умеренного климата и уменьшается в Шифане, что подчёркивает локальную адаптацию [56]. В совокупности опыт с рисом подтверждает применимость TraitDiscover для масштабируемого фенотипирования на нескольких площадках с получением длинных временных рядов. Такой подход позволяет преобразовывать слабовыраженные реакции на среду в воспроизводимые селекционные показатели. Трёхмерные характеристики полога, определяемые TraitDiscover, выявляют генотип-специфическую пластичность архитектуры и закономерности взаимодействия G×E, которые трудно обнаружить только по высоте растений или урожайности, и позволяют количественно описывать реакции на условия конкретной площадки для применения в селекции.
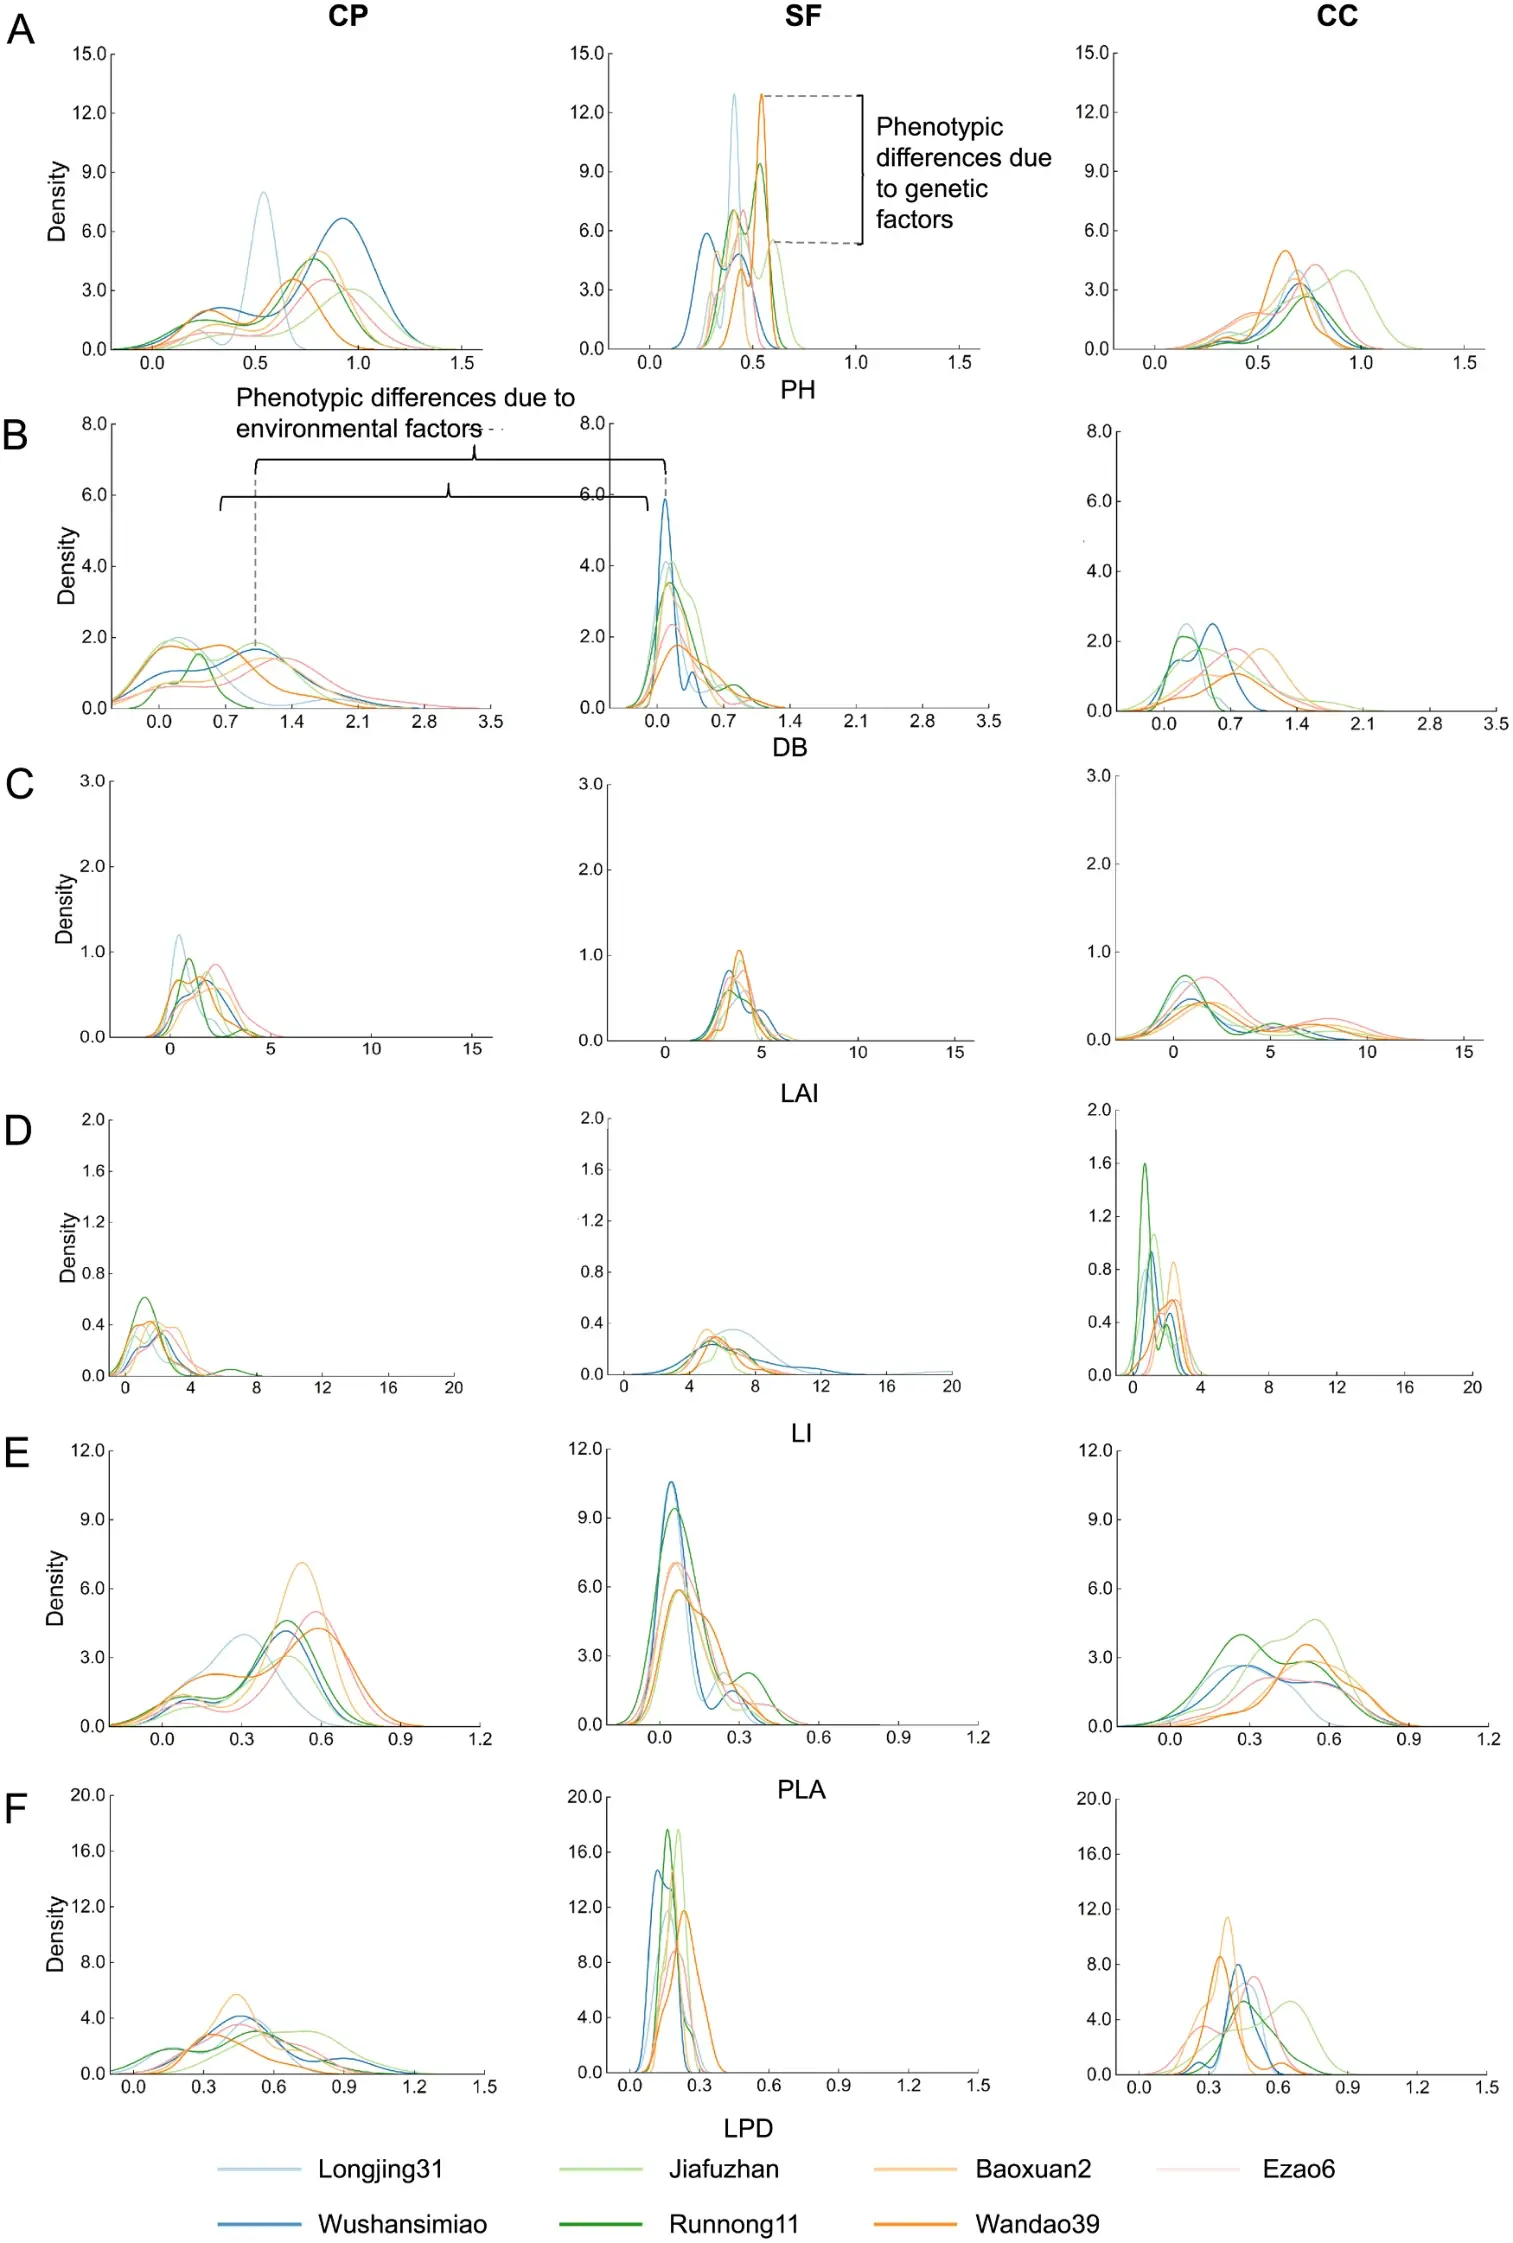
Рис. 10. Плотность распределения фенотипических признаков у сортов риса в Чанчуне (CC), Чанпине (CP) и Шифане (SF). (A) Высота растения (PH). (B) Цифровая биомасса (DB). (C) Индекс листовой поверхности (LAI). (D) Наклон листьев (LI). (E) Площадь проекции листьев (PLA). (F) Глубина проникновения света (LPD).
Обозначения: Density — плотность распределения, Phenotypic differences due to genetic factors — фенотипические различия, обусловленные генетическими факторами, Phenotypic differences due to environmental factors — фенотипические различия, обусловленные факторами среды.
4. Обсуждение
4.1. Преодоление компромисса между точностью, производительностью и гибкостью
Как отмечено во введении, современные системы высокопроизводительного фенотипирования сталкиваются с тремя ограничениями: недостаточной гибкостью, разобщённостью компонентов и асинхронностью. Это снижает их масштабируемость и надёжность. Платформа TraitDiscover специально спроектирована для преодоления этих ограничений на основе модульной и одновременно единой аппаратно-программной архитектуры. Движение портала, координация датчиков и обработка признаков объединены в одной среде выполнения и могут перенастраиваться в процессе работы под разные виды, геометрию делянок и схемы экспериментов. Такая интеграция заменяет разрозненные средства обработки единой схемой данных и общим уровнем метаданных. Она позволяет использовать аппаратные временные метки с микросекундной точностью и надёжное пространственно-временное согласование, необходимое для точного объединения мультимодальных данных. Предобработка и извлечение признаков практически в реальном времени сокращают временной разрыв между съёмкой и анализом. Эксперименты с временными рядами засушливого стресса у сои, скринингом устойчивости кукурузы к глифосату и оценкой локальной адаптации риса на нескольких площадках показывают, что одна платформа может стабильно работать с разными культурами, на разных площадках и при разных стрессовых воздействиях, выявлять ранние сигналы стресса и слабовыраженные закономерности G×E при сохранении производительности. В совокупности тесная связь между модульным оборудованием и единым программным обеспечением позволяет TraitDiscover ослабить традиционный компромисс между точностью, производительностью и гибкостью. Платформа сохраняет высокую точность измерений и возможность пользовательской настройки при переносе на разные культуры и условия в практических задачах селекции и агрономии.
4.2. Чувствительность и универсальность TraitDiscover при раннем выявлении стресса и получении данных для анализа G×E×P
TraitDiscover показала высокую эффективность многомерного фенотипирования растений и высокопроизводительного сбора данных по разным культурам и в разных экспериментальных условиях. В опытах с соей интегрированная многосенсорная система показала, что кратковременный засушливый стресс продолжительностью четыре дня существенно снижает эффективность фотосинтеза при неизменном содержании хлорофилла. Это раскрывает физиологический механизм, при котором ухудшение фотосинтетической функции предшествует деградации пигментов [57], и свидетельствует о высокой чувствительности платформы к ранним реакциям на стресс.
Аналогичным образом при скрининге устойчивости кукурузы к глифосату TraitDiscover обеспечила мониторинг шести генотипов в течение полного четырёхдневного цикла. Фенотипические изменения, зарегистрированные неразрушающим способом, согласовались с результатами ручной оценки. Возможность выявить сигналы стресса на 24 ч раньше обычной оценки на основе эффективности фотосинтеза и гиперспектральных вегетационных индексов [58] подтверждает применимость физиологических признаков в качестве чувствительных ранних индикаторов. Это согласуется с результатами исследований засушливого и солевого стресса [59].
Испытания на рисе в разных экологических зонах позволили распространить эту чувствительность на анализ G×E×P. По облакам точек проводили детальный анализ морфологических признаков, таких как высота растений, угол наклона листьев и площадь их проекции, и количественно оценивали морфологические проявления локальной адаптации при взаимодействии генотипа и среды. При переносе семи генотипов между Чанпином, Чанчунем и Шифаном платформа зарегистрировала характерные для площадок проявления локальной адаптации, например более вертикальные листья и меньшую высоту растений при низкой освещённости в Шифане. В эксперименте с пересадкой растений на несколько площадок ранги генотипов по признакам размера полога (PH, DB и PLA) оставались стабильными между Чанчунем и Чанпином, а признаки, связанные с наклоном листьев (LI, LAI и LPD), демонстрировали наиболее выраженные и систематические сдвиги между площадками. Распределения признаков показывают, что размер полога генетически стабилизирован, а наклон листьев обеспечивает основную фенотипическую пластичность. Разброс наибольший на площадках умеренного климата и уменьшается в Шифане, что подчёркивает локальную адаптацию [56].
На пяти площадках с различными климатическими условиями платформа круглосуточно собирала данные в полностью автоматизированном режиме без участия человека. Полученные высокоточные наборы данных оставались сопоставимыми при анализе тысяч делянок. Сквозная стандартизация — от синхронного запуска датчиков до единых протоколов калибровки — позволила напрямую сравнивать специфичные для генотипа пластические реакции и количественно оценивать локальную адаптацию на уровне популяций. Это подтверждает способность TraitDiscover поддерживать высокопроизводительное принятие селекционных решений независимо от площадки.
4.3. Технические ограничения и дальнейшее развитие TraitDiscover для сложных полевых условий
Платформа TraitDiscover имеет существенные ограничения при работе в сложных полевых условиях. Сильная освещённость, высокая температура и ветер могут снижать точность датчиков и приводить к пропускам или шуму в трёхмерных облаках точек. В частности, из-за помех в неблагоприятных условиях лазерные датчики могут давать ошибочные результаты измерения высоты растений или площади листьев. В дальнейшем планируется объединить адаптивную фильтрацию с пространственно-временным подавлением шума на основе глубокого обучения, чтобы уменьшить шум и систематически снижать погрешности измерений.
Масштабируемость обработки данных также остаётся ограничением. Действующие модели оценки признаков, например LAI и биомассы, часто ориентированы на конкретную культуру и недостаточно устойчивы при работе с разными видами или условиями выращивания. Это требует частого переобучения моделей или переработки алгоритмов, повышая стоимость и сложность исследований. Кроме того, хотя платформа объединяет аппаратную калибровку (шкалу ColorChecker24 для RGB и белый эталон для гиперспектральной съёмки), алгоритмическую оптимизацию (например, DepthCropSeg) и системную интеграцию (например, TraitNavigator), растущая потребность в адаптации к разным сценариям требует более универсальных интеллектуальных решений. Для этого мы планируем разработать универсальные самокалибрующиеся модели фенотипирования и внедрить протоколы федеративного обучения, которые будут непрерывно уточнять эти модели на распределённых селекционных площадках. Ещё одно ограничение состоит в том, что TraitDiscover сейчас использует несколько закрытых специализированных программных модулей собственной разработки, в том числе DepthCropSeg и PhenoNight. Они тесно связаны с оборудованием и последовательностью операций платформы. Эти компоненты пока недоступны как самостоятельные инструменты, что может ограничивать их прямое повторное использование и воспроизводимость в других исследовательских группах. Мы работаем над выделением этих компонентов в самостоятельные модули и открытием части функций для сообщества.
Дальнейшую разработку следует направить на повышение устойчивости к помехам окружающей среды, улучшение обобщающей способности моделей фенотипирования и применение искусственного интеллекта для автоматического выявления динамики роста, стрессовых сигналов и симптомов поражения вредителями или болезнями. Это позволит совершенствовать точное и масштабируемое управление посевами в реальном времени. Решение этих задач превратит TraitDiscover из платформы высокопроизводительного фенотипирования в устойчивую универсальную систему поддержки решений для селекционеров и сельхозпроизводителей, работающих в неоднородных полевых условиях.
5. Заключение
В настоящем исследовании показаны применимость и универсальность платформы TraitDiscover как комплексной системы высокопроизводительного фенотипирования, способной регистрировать многомерные признаки отдельных растений или популяций сельскохозяйственных культур на протяжении всего цикла роста. Благодаря интеграции мультимодальных датчиков, автоматизированных систем управления и современных методов анализа данных TraitDiscover позволяет перейти от селекции, основанной на опыте, к селекционным стратегиям на основе данных. Платформа продемонстрировала надёжную работу как в контролируемых тепличных условиях, так и в сложных полевых условиях. Она обеспечивает точную фенотипическую характеристику для оценки устойчивости к стрессу, анализа локальной адаптации и отбора элитных сортов. Модульная настраиваемая архитектура позволяет адаптировать платформу к разным культурам и условиям выращивания. Для основных культур, таких как кукуруза, пшеница, рис и соя, предусмотрены специализированные алгоритмические модели. Интеграция собственных методов анализа обеспечивает высокую точность и масштабируемость [40,41], устраняя существенные ограничения существующих платформ фенотипирования.
Дальнейшее развитие таких платформ зависит от междисциплинарного сотрудничества в агрономии, автоматизации, компьютерном зрении и искусственном интеллекте. В следующих версиях TraitDiscover предполагается интегрировать моделирование с использованием искусственного интеллекта, объединение мультиомных данных [16] и современные методы визуализации для извлечения биологически значимой информации из сложных фенотипических данных. В настоящей работе мы продемонстрировали способность TraitDiscover получать высококачественные наборы фенотипических данных по множеству признаков в разных условиях среды. Полное статистическое моделирование G×E×P и разработка прогностических методов с использованием более крупных выборок генотипов и геномной информации станут предметом дальнейших исследований на основе этих данных. Благодаря точному динамическому фенотипическому наблюдению платформа способна ускорить генетическое улучшение культур и содействовать созданию более устойчивых сельскохозяйственных систем в условиях изменения климата и дефицита ресурсов.
Вклад авторов по классификации CRediT
Lingli Xu — написание первоначального варианта, научное руководство, методология. Jiafei Zhang — рецензирование и редактирование текста, написание первоначального варианта, визуализация. Shijie Li — валидация, методология, проведение исследования. Guanlin Zhu — валидация, ресурсы, курирование данных. Hongbing Zhao — рецензирование и редактирование текста, администрирование проекта, разработка концепции. Jingjing Yang — написание первоначального варианта, визуализация, методология. Wenjing Li — написание первоначального варианта, визуализация, методология. Hanyu Nie — написание первоначального варианта, визуализация, валидация. Wenqi An — написание первоначального варианта, методология, проведение исследования. Bingpeng Yang — валидация, научное руководство, методология. Weijuan Hu — научное руководство, администрирование проекта, методология, привлечение финансирования. Zhiguo Han — рецензирование и редактирование текста, администрирование проекта, методология, разработка концепции.
Финансирование
Работа выполнена при совместной поддержке Шанхайской программы исследований и разработок в области ключевых технологий (25N32800100) и фонда PhenoTrait.
Доступность данных
Данные предоставляются по запросу.
Заявление о конфликте интересов
Авторы заявляют, что им не известно о каких-либо конкурирующих финансовых интересах или личных отношениях, которые могли бы восприниматься как повлиявшие на работу, представленную в настоящей статье.
Благодарности
Авторы выражают признательность команде PhenoTrait за её поддержку и вклад. Авторы благодарят д-ра Qianzhe Zhao, Feng Wang, Wenjun Tong, Chaoqun Yang, Min Meng и Pengfei Yang за вклад в проектирование конструкций, сборку и автоматизацию электрических систем. Xiaoming Yang, Xi Chen, Zhilong Huang и Yiting Ai внесли значительный вклад в разработку программного обеспечения. Профессионализм Yongshuai Zhang и Yuhui Zheng и их существенный вклад в разработку алгоритмов позволили повысить качество и точность исследования. Wujie Gao, Yin Ren и Zilin Zhang оказали значительную помощь в сборе материалов, обеспечении качества данных и подготовке рукописи. Pengcheng Pei, Zhiwei Chai и Chunming Ding давали содержательные и конструктивные рекомендации на всех этапах разработки платформы.
Дополнительные материалы
Дополнительные материалы к статье доступны в электронной версии по адресу https://doi.org/10.1016/j.atech.2025.101691.
Список литературы
[1] S. Dhondt, N. Wuyts, D. Inzé, Cell to whole-plant phenotyping: the best is yet to come, Trends. Plant. Sci. 18 (8) (2013) 428–439.
[2] Z. Han, T. Wu, J.L. Araus, Plant phenotyping trinity: health checks for plants, Trends. Plant. Sci. (2025) S1360138525001396. https://doi.org/10.1016/j.tplants.2025.05.011
[3] R.-F. Wang, H.-R. Qu, W.-H. Su, From sensors to insights: technological trends in image-based high-throughput plant phenotyping, Smart Agric. Technol. 12 (2025) 101257. https://doi.org/10.1016/j.atech.2025.101257
[4] F. Perez-Sanz, P.J. Navarro, M. Egea-Cortines, Plant phenomics: an overview of image acquisition technologies and image data analysis algorithms, Giga Sci. 6 (11) (2017) gix092.
[5] S. Das Choudhury, A. Samal, T. Awada, Leveraging image analysis for high-throughput plant phenotyping, Front. Plant. Sci. 10 (2019) 508.
[6] K.M. Murphy, E. Ludwig, J. Gutierrez, M.A. Gehan, Deep learning in image-based plant phenotyping, Annu. Rev. Plant. Biol. 75 (1) (2024) 771–795.
[7] A. Zavafer, H. Bates, C. Mancilla, P.J. Ralph, Phenomics: conceptualization and importance for plant physiology, Trends. Plant. Sci. 28 (9) (2023) 1004–1013.
[8] H. Zhang, L. Wang, X. Jin, L. Bian, Y. Ge, High-throughput phenotyping of plant leaf morphological, physiological, and biochemical traits on multiple scales using optical sensing, Crop. J. 11 (5) (2023) 1303–1318.
[9] X. Yao, T. Qian, H. Sun, S. Zhou, W. Wang, L. Li, High-throughput photosynthetic phenotyping using hyperspectral reflectance in paddy rice (oryza sativa l.) under field conditions, Smart Agric. Technol. 12 (2025) 101251. https://doi.org/10.1016/j.atech.2025.101251
[10] P. Neveu, A. Tireau, N. Hilgert, V. Nègre, J. Mineau-Cesari, N. Brichet, R. Chapuis, I. Sanchez, C. Pommier, B. Charnomordic, et al., Dealing with multi-source and multi-scale information in plant phenomics: the ontology-driven phenotyping hybrid information system, New. Phytol. 221 (1) (2019) 588–601.
[11] X. Jin, P.J. Zarco-Tejada, U. Schmidhalter, M.P. Reynolds, M.J. Hawkesford, R.K. Varshney, T. Yang, C. Nie, Z. Li, B. Ming, et al., High-throughput estimation of crop traits: a review of ground and aerial phenotyping platforms, IEEE Geosci. Remote Sens. Mag. 9 (1) (2020) 200–231.
[12] K. Shen, B. Ye, X. Yu, P. Shen, R. Yu, C. Yin, X. Xu, J. Dong, Z. Wang, H. Wu, et al., Dissection of genomic drivers of spike morphology changes in wheat by high-throughput phenotyping, Cell. Rep. 44 (8) (2025). https://doi.org/10.1016/j.celrep.2025.116120
[13] M. Su, D. Zhou, Y. Yun, B. Ding, P. Xia, X. Yao, J. Ni, Y. Zhu, W. Cao, Design and implementation of a high-Throughput field phenotyping robot for acquiring multi-sensor data in wheat, Plant Phenom. 7 (2) (2025) 100014. https://doi.org/10.1016/j.plaphe.2025.100014
[14] M.A. Hassan, C.Y.-Y. Chang, Phenogazer: a high-Throughput phenotyping system to track plant stress responses using hyperspectral reflectance, nighttime chlorophyll fluorescence and RGB imaging in controlled environments, Plant Phenom. 7 (2) (2025) 100047. https://doi.org/10.1016/j.plaphe.2025.100047
[15] T. Wu, P. Shen, J. Dai, Y. Ma, Y. Feng, A pathway to assess genetic variation of wheat germplasm by multidimensional traits with digital images, Plant Phenom. 5 (2023) 0119. https://doi.org/10.34133/plantphenomics.0119
[16] D. Li, C. Quan, Z. Song, X. Li, G. Yu, C. Li, A. Muhammad, High-throughput plant phenotyping platform (HT3P) as a novel tool for estimating agronomic traits from the lab to the field, Front. Bioeng. Biotechnol. 8 (2021) 623705.
[17] J. Fu, S. Zheng, L. Fan, X. Zheng, Q. Qian, Breeding 5.0: artificial intelligence (AI)-decoded germplasm for accelerated crop innovation, J. Integr. Plant. Biol. (2025). https://doi.org/10.1111/jipb.70008
[18] R.D. Hall, J.C. D’Auria, A.C.S. Ferreira, Y. Gibon, D. Kruszka, P. Mishra, R. Van de Zedde, High-throughput plant phenotyping: a role for metabolomics?, Trends. Plant. Sci. 27 (6) (2022) 549–563.
[19] Y. Xie, T. Zhang, M. Yang, H. Lyu, Y. Zou, Y. Sun, J. Xiao, W. Lian, J. Tao, H. Han, C. Xu, Engineering crop flower morphology facilitates robotization of cross-pollination and speed breeding, Cell 180 (4) (2025) 1–12. https://doi.org/10.1016/j.cell.2025.07.028
[20] D.T. Smith, A.B. Potgieter, S.C. Chapman, Scaling up high-throughput phenotyping for abiotic stress selection in the field, Theor. Appl. Genet. 134 (6) (2021) 1845–1866.
[21] A. Singh, S. Jones, B. Ganapathysubramanian, S. Sarkar, D. Mueller, K. Sandhu, K. Nagasubramanian, Challenges and opportunities in machine-augmented plant stress phenotyping, Trends. Plant. Sci. 26 (1) (2021) 53–69.
[22] J.L. Araus, S.C. Kefauver, M. Zaman-Allah, M.S. Olsen, J.E. Cairns, Translating high-throughput phenotyping into genetic gain, Trends. Plant. Sci. 23 (5) (2018) 451–466.
[23] P. Kumar, J. Singh, G. Kaur, P.M. Adunola, A. Biswas, S. Bazzer, H. Kaur, I. Kaur, H. Kaur, K.S. Sandhu, et al., OMICS In fodder crops: applications, challenges, and prospects, Curr. Issues. Mol. Biol. 44 (11) (2022) 5440–5473.
[24] M. Watt, F. Fiorani, B. Usadel, U. Rascher, O. Muller, U. Schurr, Phenotyping: new windows into the plant for breeders, Annu. Rev. Plant. Biol. 71 (1) (2020) 689–712.
[25] R.R. Mir, M. Reynolds, F. Pinto, M.A. Khan, M.A. Bhat, High-throughput phenotyping for crop improvement in the genomics era, Plant Sci. 282 (2019) 60–72.
[26] T. Hu, P. Shen, Y. Zhang, J. Zhang, X. Li, C. Xia, P. Liu, H. Lu, T. Wu, Z. Han, Openpheno: an open-access, user-friendly, and smartphone-based software platform for instant plant phenotyping, Plant Methods 21 (1) (2025) 76.
[27] T. Gill, S.K. Gill, D.K. Saini, Y. Chopra, J.P. de Koff, K.S. Sandhu, A comprehensive review of high throughput phenotyping and machine learning for plant stress phenotyping, Phenomics 2 (3) (2022) 156–183.
[28] R. Pieruschka, U. Schurr, Plant phenotyping: past, present, and future, Plant Phe-nom. 2019 (2019) 7507131.
[29] R. Xu, C. Li, A review of high-Throughput field phenotyping systems: focusing on ground robots, Plant Phenom. 2022 (2022) 9760269. https://doi.org/10.34133/2022/9760269
[30] M.H. Rahman, S. Busby, S. Hanif, M.M. Maruf, F. Ahmad, S. Ru, A. Sanz-Saez, J. Zheng, T.U. Rehman, A graph convolutional network approach for hyperspectral image analysis of blueberries physiological traits under drought stress, Smart Agric. Technol. 10 (2025) 100743. https://doi.org/10.1016/j.atech.2024.100743
[31] F.R. Ispizua Yamati, J. Bömer, N. Noack, T. Linkugel, S. Paulus, A.-K. Mahlein, Con-figuration of a multisensor platform for advanced plant phenotyping and disease detection: case study on cercospora leaf spot in sugar beet, Smart Agric. Technol. 10 (2025) 100740. https://doi.org/10.1016/j.atech.2024.100740
[32] M.K. Gerullis, W. Schulz, Robustness of plant breeding systems under automated phenotyping, Smart Agric. Technol. 5 (2023) 100225. https://doi.org/10.1016/j.atech.2023.100225
[33] H. Poorter, G.M. Hummel, K.A. Nagel, F. Fiorani, P. von Gillhaussen, O. Virnich, U. Schurr, J.A. Postma, R. van de Zedde, A. Wiese-Klinkenberg, Pitfalls and poten-tial of high-throughput plant phenotyping platforms, Front. Plant. Sci. 14 (2023) 1233794.
[34] Y. Rouphael, L. Spíchal, K. Panzarová, R. Casa, G. Colla, High-throughput plant phenotyping for developing novel biostimulants: from lab to field or from field to lab?, Front. Plant. Sci. 9 (2018) 1197.
[35] N. Fahlgren, M.A. Gehan, I. Baxter, Lights, camera, action: high-throughput plant phenotyping is ready for a close-up, Curr. Opin. Plant Biol. 24 (2015) 93–99.
[36] F. Tardieu, L. Cabrera-Bosquet, T. Pridmore, M. Bennett, Plant phenomics, from sensors to knowledge, Current Biol. 27 (15) (2017) R770–R783.
[37] M.M. Rahaman, D. Chen, Z. Gillani, C. Klukas, M. Chen, Advanced phenotyping and phenotype data analysis for the study of plant growth and development, Front. Plant. Sci. 6 (2015) 619.
[38] A. Singh, B. Ganapathysubramanian, A.K. Singh, S. Sarkar, Machine learning for high-throughput stress phenotyping in plants, Trends. Plant. Sci. 21 (2) (2016) 110–124.
[39] N. Shakoor, S. Lee, T.C. Mockler, High throughput phenotyping to accelerate crop breeding and monitoring of diseases in the field, Curr. Opin. Plant Biol. 38 (2017) 184–192.
[40] S. Cao, B. Xu, W. Zhou, L. Zhou, J. Zhang, Y. Zheng, W. Hu, Z. Han, H. Lu, The blessing of depth anything: an almost unsupervised approach to crop segmentation with depth-Informed pseudo labeling, Plant Phenom. (2025) 100005.
[41] B. Xu, J. Zhang, Z. Tang, Y. Zhang, L. Xu, H. Lu, Z. Han, W. Hu, Nighttime environment enables robust field-based high-throughput plant phenotyping: a system platform and a case study on rice, Comput. Electron. Agric. 235 (2025) 110337.
[42] M.S. Akhtar, Z. Zafar, R. Nawaz, M.M. Fraz, Unlocking plant secrets: a systematic review of 3D imaging in plant phenotyping techniques, Comput. Electron. Agric. 222 (2024) 109033. https://doi.org/10.1016/j.compag.2024.109033
[43] M.L. Buchaillot, A. Gracia-Romero, O. Vergara-Diaz, M.A. Zaman-Allah, A. Tarekegne, J.E. Cairns, B.M. Prasanna, J.L. Araus, S.C. Kefauver, Evaluating maize genotype performance under low nitrogen conditions using RGB UAV phenotyping techniques, Sensors 19 (8) (2019) 1815.
[44] S. Jay, F. Maupas, R. Bendoula, N. Gorretta, Retrieving LAI, chlorophyll and nitrogen contents in sugar beet crops from multi-angular optical remote sensing: comparison of vegetation indices and PROSAIL inversion for field phenotyping, Field. Crops. Res. 210 (2017) 33–46.
[45] S. Merlot, A.-C. Mustilli, B. Genty, H. North, V. Lefebvre, B. Sotta, A. Vavasseur, J. Giraudat, Use of infrared thermal imaging to isolate arabidopsis mutants defective in stomatal regulation, The Plant J. 30 (5) (2002) 601–609.
[46] R.L. Visakh, S. Anand, S.B. Reddy, U.C. Jha, R.P. Sah, R. Beena, Precision phenotyping in crop science: from plant traits to gene discovery for climate-Smart agriculture, Plant Breed. (2024).
[47] Y. Jiang, J.L. Snider, C. Li, G.C. Rains, A.H. Paterson, Ground based hyperspectral imaging to characterize canopy-level photosynthetic activities, Remote Sens. (Basel) 12 (2) (2020) 315.
[48] N. Bendel, A. Kicherer, A. Backhaus, H.-C. Klück, U. Seiffert, M. Fischer, R.T. Voegele, R. Töpfer, Evaluating the suitability of hyper-and multispectral imaging to detect foliar symptoms of the grapevine trunk disease esca in vineyards, Plant Methods 16 (2020) 1–18.
[49] A. Hairmansis, B. Berger, M. Tester, S.J. Roy, Image-based phenotyping for non-destructive screening of different salinity tolerance traits in rice, Rice 7 (2014) 1–10.
[50] D.-M. Wen, M.-X. Chen, L. Zhao, T. Ji, M. Li, X.-T. Yang, Use of thermal imaging and fourier transform infrared spectroscopy for the pre-symptomatic detection of cucumber downy mildew, Eur. J. Plant Pathol. 155 (2019) 405–416.
[51] B. Lazarević, Z. Šatović, A. Nimac, M. Vidak, J. Gunjača, O. Politeo, K. Carović-Stanko, Application of phenotyping methods in detection of drought and salinity stress in basil (ocimum basilicum l.), Front. Plant. Sci. 12 (2021) 629441.
[52] A.M. Gilmore, Mechanistic aspects of xanthophyll cycle-dependent photoprotection in higher plant chloroplasts and leaves, Physiol Plant 99 (1) (1997) 197–209.
[53] M.P. Gomes, S.G. Le Manac’h, L. Hénault-Ethier, M. Labrecque, M. Lucotte, P. Juneau, Glyphosate-dependent inhibition of photosynthesis in willow, Front. Plant. Sci. 8 (2017) 207.
[54] A.J. Burgess, R. Retkute, T. Herman, E.H. Murchie, Exploring relationships between canopy architecture, light distribution, and photosynthesis in contrasting rice genotypes using 3D canopy reconstruction, Front. Plant. Sci. 8 (2017) 734.
[55] T. Sakamoto, Y. Morinaka, T. Ohnishi, H. Sunohara, S. Fujioka, M. Ueguchi-Tanaka, M. Mizutani, K. Sakata, S. Takatsuto, S. Yoshida, et al., Erect leaves caused by brassinosteroid deficiency increase biomass production and grain yield in rice, Nat. Biotechnol. 24 (1) (2006) 105–109.
[56] Y. Zhao, K. Vrieling, H. Liao, M. Xiao, Y. Zhu, J. Rong, W. Zhang, Y. Wang, J. Yang, J. Chen, et al., Are habitat fragmentation, local adaptation and isolation-by-distance driving population divergence in wild rice o ryza rufipogon?, Mol. Ecol. 22 (22) (2013) 5531–5547.
[57] C. Hu, E. Elias, W.J. Nawrocki, R. Croce, Drought affects both photosystems in arabidopsis thaliana, New Phytol. 240 (2) (2023) 663–675.
[58] M. Tao, X. Bai, J. Zhang, Y. Wei, Y. He, Time-series monitoring of transgenic maize seedlings phenotyping exhibiting glyphosate tolerance, Processes 10 (11) (2022) 2206.
[59] M.A.A. Arief, H. Kim, H. Kurniawan, A.P. Nugroho, T. Kim, B.-K. Cho, Chlorophyll fluorescence imaging for early detection of drought and heat stress in strawberry plants, Plants 12 (6) (2023) 1387.
20 ноября 2026